Репликативное исследование вовлеченности генов длинных некодирующих РНК в манифестацию антисоциального поведения
Журнал: Журнал неврологии и психиатрии им. С.С. Корсакова. 2025;125(11):145-150.
DOI: 10.17116/jnevro2025125111145
Прочитано: 1756 раз
Резюме
ЦЕЛЬ ИССЛЕДОВАНИЯ
Проведение репликативного анализа генетических локусов, ассоциированных с риском проявления антисоциального поведения (АП) в европейских когортах, с манифестацией крайних форм АП (убийств) с учетом этнической принадлежности в российской выборке.
МАТЕРИАЛ И МЕТОДЫ
Обследованы две группы лиц: с АП (n=227) и контрольная (n=254), с помощью логистической регрессии, в которой данные генетического профиля и социально-демографические параметры выступали в качестве независимых переменных.
РЕЗУЛЬТАТЫ
Подтверждены ассоциации вариантов rs4714329*G/G в гене LINK00951 (OR=2,92, p=0,006), rs7232069*G в гене LINK00907 (OR=2,0, p=0,006) и rs12977121*A/A в гене CSNK1G2 (OR=1,76, p=0,044) с повышенным риском развития АП среди русских. Отмечен значимый эффект табакокурения на ассоциацию локуса в гене CSNK1G2: повышение риска манифестации крайних форм АП наблюдалось у лиц с никотиновой зависимостью — носителей генотипа rs12977121*A/A (OR=3,63, p=0,001).
ЗАКЛЮЧЕНИЕ
Полученные данные указывают на потенциальную вовлеченность генов длинных некодирующих РНК и казеинкиназы в развитие агрессивности.
Ключевые слова
- агрессия
- убийство
- GWAS
- эпигенетика
- некодирующие РНК
- биомаркеры
Дата поступления: 21.07.2025
Дата принятия в печать: 12.08.2025
Дата публикации: 09.12.2025
Агрессивное поведение представляет собой эволюционно закрепленный тип поведения, комплексный феномен, подразумевающий направленное совершение действий для причинения вреда или ущерба в отношении другого живого объекта. Несмотря на то что в эволюционной перспективе уровень агрессивного и антисоциального поведения (АП) снижается, в последние годы наблюдается всплеск случаев домашнего насилия, буллинга и моббинга, являясь важной социальной проблемой. Рассматриваемые факторы, лежащие в основе манифестации АП, включают особенности микро- и макроокружения, а также специфику генетического профиля, который определяет 50—80% предрасположенности к данному типу поведения [1]. Существующие к настоящему времени представления о механизмах формирования агрессивного поведения и АП предполагают участие нейромедиаторных систем [2], нарушения гипоталамо-гипофизарно-надпочечниковой регуляции [3], а также посредников эпигенетических процессов [4] как у человека, так и у других живых организмов [5]. Тем не менее в связи с активным использованием полногеномного подхода (genome-wide association study, GWAS) удалось выявить несколько десятков генетических локусов, связанных с манифестацией различных типов АП [6—9], репликация которых проводилась только на выборках европейского происхождения.
Несмотря на значительный научный интерес в отношении выявления факторов и биомаркеров, связанных с манифестацией АП [6—10], проводимые исследования и опубликованные результаты довольно гетерогенны. С одной стороны, эта гетерогенность обусловлена популяционным разнообразием изучаемых выборок, с другой — типом анализируемого АП. Предполагается, что молекулярные механизмы, лежащие в основе этиопатогенеза антисоциальных фенотипов, затрагивают общие молекулярные системы, что послужило основой для проведения метаанализа, обобщающего данные различных фенотипических проявлений АП. В частности, один из недавних метанализов [6] представляет собой результаты биоинформатической обработки полногеномных данных, полученных у более 85 тысяч лиц в рамках деятельности консорциума Broad Antisocial Behavior Consortium (BroadABC). Одними из наиболее статистически значимых локусов, идентифицированных в этой работе, являются rs12536335 в гене FOXP2 (p=6,3·10–10), rs12977121 в гене CSNK1G2 (p=9,4·10–8), rs7232069 в гене LINC00907 (p=1,5·10–7), rs68072647 в гене NTN1 (p=6,3·10–7), rs1671498 в гене LOC101928367 (p=2,1·10–6) и rs2829734 в гене LINK00158 (p=3,4·10–6). Причем последние два являются специфичными для мужчин. В одном из исследований GWAS, направленных на идентификацию генетических локусов, ассоциированных с риском манифестации антисоциального расстройства личности в когорте лиц финского происхождения, находящихся в местах тюремного заключения, был выявлен генетический вариант rs4714329 в гене длинной некодирующей РНК (днРНК) (LINC00951), ассоциированный с криминальным поведением [7]. Причем данная ассоциация была реплицирована в метаанализе, включающем независимую выборку. Однако генетических данных лиц с крайним уровнем АП, таким как совершение тяжких преступлений против личности (убийств), к настоящему времени недостаточно.
Учитывая необходимость верификации вовлеченности генетических локусов, идентифицированных в европейских когортах, в развитие антисоциального поведения в разных этнических группах РФ, целью настоящего исследования являлось проведение репликативного анализа ассоциаций вышеуказанных генетических вариантов с манифестацией крайних форм АП (убийств) с учетом этнической принадлежности в российской выборке. Кроме того, поскольку ранее нами было показано важное значение социально-демографических характеристик в развитии АП [11], а также влияние средовых факторов посредством эпигенетической регуляции активности генов [12], другой задачей исследования было проведение анализа ген-средовых взаимодействий, потенциально связанных с формированием АП.
Материал и методы
Материалом для исследования послужили образцы ДНК, выделенные из биологического материала (венозной крови) 227 лиц (93% мужчин), совершивших тяжкие или особо тяжкие преступления (убийства) и проходивших на момент забора крови судебную психиатрическую экспертизу по уголовному делу. В выборку были включены лица из Волго-Уральского региона РФ (ВУР) (109 русских, 79 татар и 39 башкир, средний возраст 41,7±14,6 года), признанные судом вменяемыми и направленные отбывать наказание в места лишения свободы. Контрольную группу сформировали согласно принципу соответствия группе лиц с АП по половой, возрастной и этнической принадлежностям: были включены 254 психически здоровых лица (88% мужчин, средний возраст 37,1±18,4 года) русской (n=117), татарской (n=91) и башкирской этнической принадлежности (n=45). Входившие в контрольную группу лица не состояли на учете у психиатра и отрицали наличие у себя наследственной отягощенности по психическим заболеваниям. Информированное согласие на участие в исследовании было получено от всех обследованных лиц после ознакомления с процедурой эксперимента.
Критерии включения: совершение особо тяжкого преступления (убийства) в анамнезе; возраст 18—80 лет; русские, татары или башкиры по этнической принадлежности; признание судом состояния вменяемости на момент совершения преступления; отсутствие приема психотропных препаратов (кроме никотина) на момент обследования.
Критерии невключения: наличие коморбидной психической патологии: шизофрении, шизотипических состояний, бредовых расстройств (F20—F29); отсутствие подписанного информированного согласия.
Выбор полиморфных локусов из вышеуказанных метаанализов АП [6, 7] основывался на следующих критериях: уровне статистической значимости; локализации в разных, не сцепленных хромосомных регионах; 90% идентичности направления эффекта минорного аллеля в отношении АП в когортах, входивших в метаанализ; частоте минорного аллеля в европейских популяциях (согласно данным проекта «1000 Genomes») >0,05. Из одного хромосомного региона выбирался однонуклеотидный полиморфизм (SNP) с наименьшим уровнем значимости. Кроме того, были выбраны два «топовых» генетических локуса, специфичные для лиц мужского пола, поскольку основную группу лиц, входивших в изучаемую нами выборку, составляли мужчины. Генотипирование полиморфных локусов осуществлялось методом конкурентной аллель-специфичной ПЦР в реальном времени (ООО «Максим Медикал», LGC Genomics, UK) с детекцией флюоресценции по конечной точке на амплификаторе CFX96 («BioRad», США).
Данное исследование было одобрено локальным Биоэтическим комитетом ИБГ УФИЦ РАН (протокол №15 от 12.10.2017).
Статистический анализ. Статистическая обработка результатов генотипирования включала проверку распределения частот генотипов на соответствие теоретически ожидаемому согласно закону
Харди—Вайнберга. Не было выявлено отклонения от такого соответствия для всех изученных локусов (p>0,05) ни в группе контроля, ни среди лиц с АП. Для сравнения распределения частот аллелей генетических локусов в разных этнических группах ВУР с основными мировыми популяциями были использованы данные проекта «1000 Genomes»1. Анализ ассоциаций проводился с использованием метода логистической регрессии (PLINK v.1.09) в рамках анализа аддитивной, доминантной и рецессивной моделей, учитывающих эффект минорных аллелей. В качестве зависимой переменной выступал статус лица («случай»—контроль), а в качестве независимых предикторов были использованы генотипы, а также социально-демографические параметры (для оценки ген-средовых взаимодействий). К последним относились данные: о зависимости от психоактивных веществ и никотина, семейной отягощенности психопатологическими расстройствами или криминальном поведении родственников, наличии тяжелых соматических заболеваний, черепно-мозговой травмы в анамнезе, суицидальных попыток, уровне образования и дохода, порядке рождения, случаях насилия в детском возрасте, воспитании в полной/неполной семье, типе агрессивного поведения (реактивный/проактивный тип). Анализ осуществляли как в общей группе с учетом пола и этнической принадлежности как ковариат, так и отдельно в группах русских, татар, башкир для оценки потенциального этноспецифичного эффекта. В случае выявления значимого эффекта ген-средового взаимодействия на риск манифестации АП был проведен стратификационный анализ (SPSS v.23) с целью выявления конкретной группы риска. Уровень статистической значимости принимался равным p<0,05.
Результаты
Поскольку данные генетические локусы изучаются впервые в российских популяциях, был проведен сравнительный анализ частот аллелей и генотипов в основных этнических группах ВУР (русских, татар, башкир) по сравнению с мировыми популяциями. Были выявлены статистически значимые различия в частотах минорных аллелей генетических локусов rs4714329 и rs12977121 между русскими, башкирами и татарами (p<0,05) (см. рисунок).
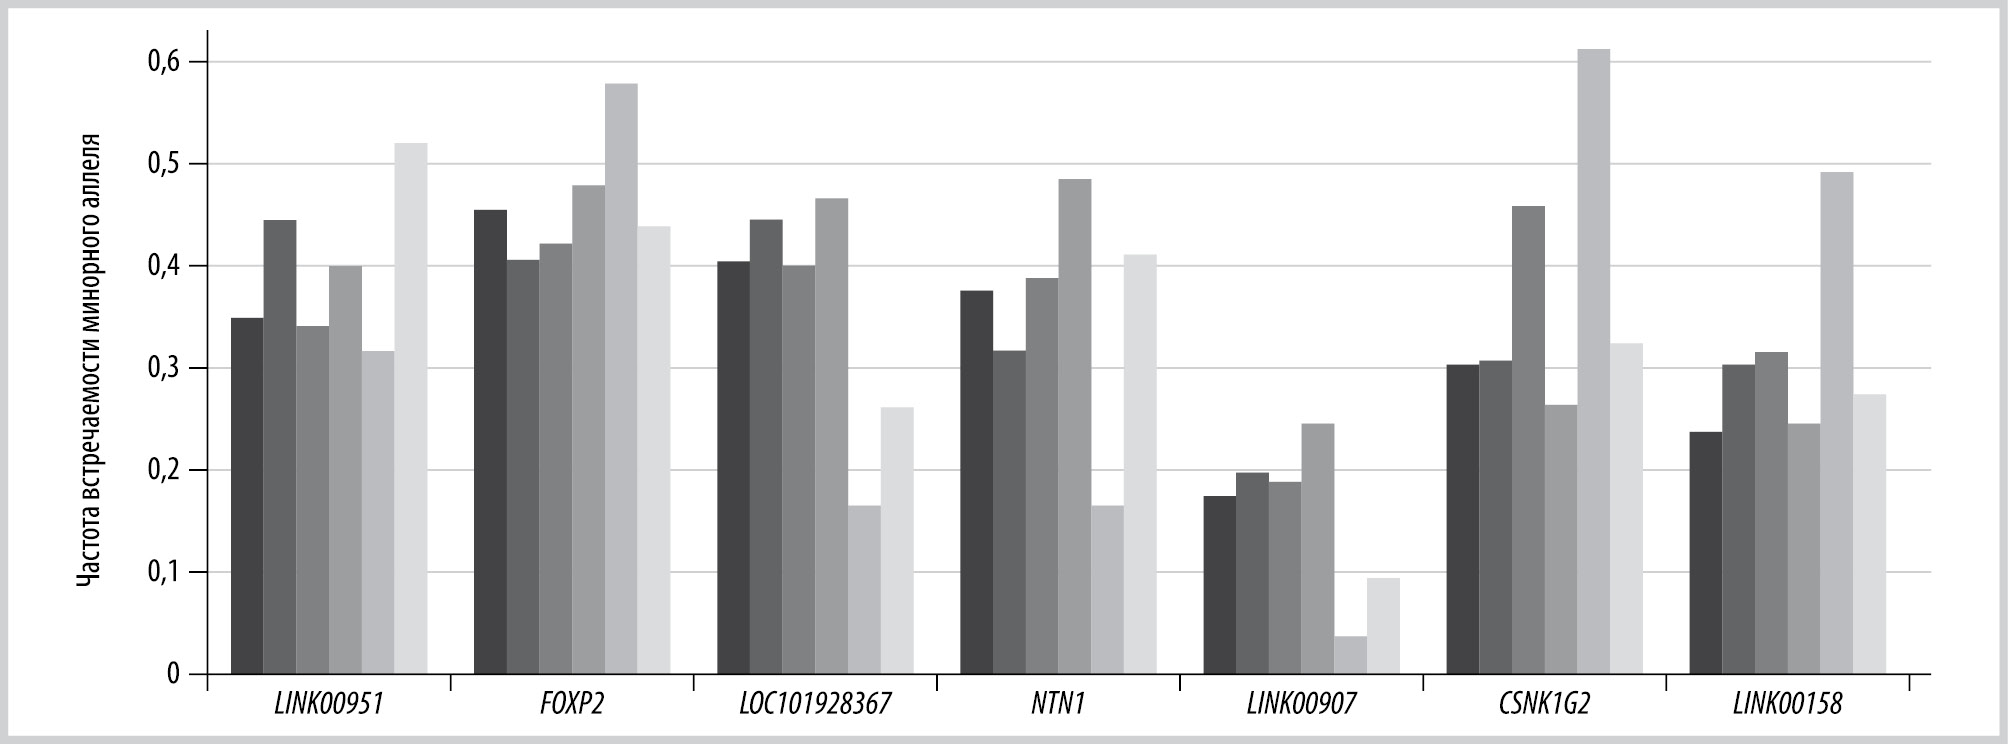
Частоты минорных аллелей изученных полиморфных локусов в популяциях ВУР (русских, татар, башкир) и некоторых популяциях мира (согласно проекту «1000 Genomes»).
Обозначения столбцов слева направо: первый — русские, второй — татары, третий — башкиры, четвертый — европейцы, пятый — восточные азиаты, шестой — южные азиаты.
По большинству генетических локусов частоты минорных аллелей соответствовали таковым, выявленным в европейских популяциях, и отличались от жителей Восточной Азии (по всем локусам, кроме rs4714329) и Южной Азии (по локусам rs4714329, rs1671498, rs7232069) (p<0,05). Частоты минорных аллелей всех изученных SNP в популяциях ВУР представлены в таблице.
Частоты изученных аллельных вариантов в группе лиц с агрессивным поведением и контроле и анализ ассоциаций SNP с манифестацией АП в различных группах
SNP | Ген | МИ/МА | Эффект | Общая группа | Русские | Татары | Башкиры | ||||||||||||
MAFA | MAFK | β | p | MAFA | MAFK | β | p | MAFA | MAFK | β | p | MAFA | MAFK | β | p | ||||
rs4714329 | LINK00951 | G/A | + | 0,414 | 0,389 | 0,80 | 0,423 | 0,446 | 0,355 | 2,73* | 0,006* | 0,345 | 0,453 | –2,14 | 0,032 | 0,444 | 0,346 | 1,36 | 0,172 |
rs12536335 | FOXP2 | G/A | – | 0,430 | 0,438 | –0,23 | 0,814 | 0,480 | 0,461 | 0,39 | 0,694 | 0,392 | 0,412 | –0,38 | 0,703 | 0,319 | 0,427 | –1,71 | 0,087* |
rs1671498 | LOC101928367 | G/A | + | 0,446 | 0,424 | 0,66 | 0,507 | 0,475 | 0,409 | 1,38 | 0,168 | 0,419 | 0,451 | –0,57 | 0,568 | 0,375 | 0,405 | –0,41 | 0,679 |
rs68072647 | NTN1 | G/A | + | 0,357 | 0,362 | –0,14 | 0,891 | 0,397 | 0,381 | 0,37 | 0,715 | 0,297 | 0,323 | –0,49 | 0,621 | 0,361 | 0,393 | –0,40 | 0,690 |
rs7232069 | LINK00907 | G/A | + | 0,215 | 0,188 | 1,05 | 0,292 | 0,284 | 0,178 | 2,75 | 0,006 | 0,155 | 0,201 | –1,07 | 0,283 | 0,167 | 0,195 | –0,45 | 0,655 |
rs12977121 | CSNK1G2 | G/A | – | 0,294 | 0,338 | –1,46 | 0,141 | 0,230 | 0,308 | –2,01 | 0,044** | 0,297 | 0,310 | –0,25 | 0,797 | 0,472 | 0,464 | 0,11 | 0,904 |
rs2829734 | LINK00158 | T/G | + | 0,295 | 0,279 | 0,51 | 0,606 | 0,282 | 0,243 | 0,89 | 0,371 | 0,264 | 0,309 | –0,92 | 0,356 | 0,357 | 0,321 | 0,49 | 0,622 |
Примечание. МИ/МА — минорный аллель/мажорный аллель; эффект — направление эффекта минорного аллеля в предыдущих метаанализах АП [6, 7]; MAF — частота минорного аллеля; A — группа лиц с агрессивным поведением, K — контрольная группа; β — регрессионный коэффициент. Статистически значимые различия выделены жирным шрифтом. Отмечены регрессионные модели, учитывающие рецессивную (*) и доминантную (**) модели эффекта локуса.
В результате статистического анализа были подтверждены ассоциации полиморфных локусов rs4714329 в гене LINK00951, rs7232069 в гене LINK00907 и rs12977121 в гене CSNK1G2 среди русских (см. таблицу). Причем направление ассоциации среди русских и в метаанализах совпадало. В частности, более высокий риск развития АП был продемонстрирован для носителей минорного генотипа rs4714329*G/G (OR=2,92, 95% ДИ 1,35—6,31) и мажорного генотипа rs12977121*A/A (OR=1,76, 95% ДИ 1,01—3,04) и аллеля rs7232069*G (OR=2,0, 95% ДИ 1,22—3,27), что также согласовывалось с результатами предыдущих метаанализов [6, 7]. Нами также была подтверждена вовлеченность полиморфного локуса rs4714329 в гене LINK00951 в манифестацию АП у лиц татарской этнической принадлежности, однако направление эффекта минорного аллеля было противоположным таковому, продемонстрированному для русских. Таким образом, для татар наблюдалась связь минорного аллеля rs4714329*G с пониженным риском предрасположенности к крайним формам АП. Данное наблюдение объясняется повышением частоты носительства минорного аллеля rs4714329*G среди контрольной группы по сравнению с лицами с АП татарской этнической принадлежности, в то время как среди русских и башкир наблюдается обратный характер носительства. Причем частота минорного аллеля данного локуса в контрольной группе была дополнительно подтверждена в независимой когорте здоровых лиц татарского происхождения (0,449), что исключает случайность этого значения.
На следующем этапе статистической обработки был проведен анализ наличия потенциальных ген-средовых взаимодействий, связанных с риском манифестации АП. В результате анализа было обнаружено влияние табакокурения на ассоциацию полиморфного локуса rs12977121 в гене CSNK1G2 (β=–2,20, p=0,027) с АП. Причем повышенный риск был характерен для лиц с никотиновой зависимостью — носителей генотипа rs12977121*A/A (β=1,29; p=0,001; OR=3,63). Другие изученные социально-демографические параметры не продемонстрировали своей значимости в контексте ген-средовых взаимодействий.
Обсуждение
В настоящем исследовании была реплицирована ассоциация генетических локусов, расположенных в генах днРНК (LINK00951 и LINK00907), а также гена казеинкиназы 1 (CSNK1G2) с риском манифестации АП у русских из ВУР. Полиморфные варианты rs4714329 в гене LINK00951 и rs7232069 в гене LINK00907 ранее были идентифицированы в рамках GWAS предрасположенности к криминальному поведению, проведенного в финской популяции [7] и в большой когорте европейцев [6]. Стоит отметить, что этот же аллель rs4714329*G был связан с повышенной предрасположенностью к АП в общей финской популяции, причем данная зависимость наблюдалась среди мужчин, воспитывавшихся в неблагоприятных условиях в детском возрасте [7]. Другие доказательства вовлеченности полиморфного варианта rs4714329 в формирование экстернализирующего поведения приведены в исследовании I. Ruisch и соавт. [13], выявивших большую чувствительность к манифестации АП в детском возрасте у носителей «рискового» генотипа G/G, которые подвергались воздействию никотина во время своего пренатального развития. Биоинформатический анализ демонстрирует, что локус rs4714329 находится в регионе eQTL и связан с дифференциальным уровнем экспрессии гена LINK00951 в мозжечке. Несмотря на то что основным регулятором импульсивности и ингибирующего поведения является префронтальная кора, в которой также отмечен высокий уровень экспрессии LINK00951 (согласно базе данных Braineac), сообщается об изменениях коннективности между мозжечком и миндалевидным комплексом у лиц с крайними формами АП [14]. Важно отметить, что ген днРНК LINK00951 расположен вблизи главного комплекса гистосовместимости (HLA, 6p21.2), вовлеченного в развитие психических расстройств [15]. Другой ассоциированный локус (rs7232069) расположен в регионе 18q12.3, структурные изменения в котором приводят к задержке речевого и интеллектуального развития [16] и связаны с манифестацией маниакальных эпизодов при шизофрении и биполярном расстройстве [17], что указывает на его потенциальное участие в регуляции агрессивности.
К настоящему времени нет прямых доказательств вовлеченности днРНК LINK00951 и LINK00907 в формирование агрессии. Единичные работы указывают на потенциальный эффект гиперэкспрессии гена LINK00907 на внутриклеточное увеличение уровня липидов [18], в то время как изменения нуклеотидной последовательности в гене LINK00951 связывают с риском развития онкологических заболеваний [19]. Тем не менее в последнее время активный интерес при изучении механизмов развития различных психических расстройств направлен на выявление роли днРНК в их этиологии. Известно, что днРНК участвуют в рекрутировании репрессивного комплекса Polycomb, приводя к модификациям гистонов, связанных с репрессией хроматина [20], определяя изменения транскриптомного профиля посредством cis и trans регуляции экспрессии генов [21]. Одна из недавних работ, направленная на выявление дифференциально метилированных CpG-сайтов между лицами с различным уровнем агрессивности, продемонстрировала вовлеченность сайта вблизи днРНК LINC02068 [22]. Кроме того, сообщается о вкладе днРНК в межгенерационное эпигенетическое наследование и регуляцию генов, отвечающих за развитие головного мозга и особенности поведения. В частности, введение днРНК, выделенной из семенной жидкости мышей, подвергшихся воздействию стрессового гормона, в фертилизованные ооциты впоследствии приводило к развитию взрослых особей мышей, характеризуемых изменениями в уровне тревожности и аффективным поведением [23]. Таким образом, можно предположить, что негативные стрессовые воздействия, пережитые отцами лиц с АП в преконцепционный период, могут предопределять изменения в эпигенетической регуляции генома и быть связанными с манифестацией АП.
Другой подтвержденной ассоциацией в группе русских являлся локус rs12977121 в гене CSNK1G2, аллельный вариант которого (аллель A) являлся «рисковым» для манифестации АП также среди объединенной когорты лиц европейского происхождения [6]. Ген CSNK1G2 кодирует казеинкиназу 1, участвующую в эндоцитозе, сигнальной трансдукции, регуляции Wnt сигналинга. Несмотря на то что к настоящему времени нет прямых свидетельств о вовлеченности гена CSNK1G2 в формирование особенностей поведения, геномный регион его локализации (19p13.3) в предыдущих работах был связан с индивидуальными вариациями в уровне эмоциональной неустойчивости [24], развитием шизофрении [25] и задержкой психоречевого развития [26].
Стоит отметить, что полученные данные указывают на важную роль табакокурения в CSNK1G2-опосредованной ассоциации с АП. Связь никотиновой зависимости с развитием АП может быть обусловлена влиянием никотина на деятельность ЦНС посредством повышения стрессовой чувствительности, нарушения моноаминергической нейротрансмиссии и изменения эпигенетической регуляции вовлеченных генов [4, 27]. Важно отметить, что негативный эффект никотина на развитие поведенческих нарушений наблюдается только в случае носительства «рискового» генетического профиля [28].
Полученные результаты имеют ряд ограничений. Во-первых, выборка лиц, совершивших тяжкие преступления против личности, небольшого размера, что, безусловно, указывает на необходимость ее увеличения. Во-вторых, нами не были учтены такие средовые факторы (ввиду отсутствия таких данных), как наличие сильных потрясений и стрессовых ситуаций у испытуемых, а также у их родителей в преконцепционный и пренатальный периоды, особенности детско-родительских отношений и влияние окружения. Существующие биоинформатические инструменты позволяют спрогнозировать потенциальный эффект генетических локусов в зависимости от их геномного контекста на регуляцию экспрессии генов, изменения в связывании с транскрипционными факторами и микроРНК и т.п. Тем не менее возможность использования системы геномного редактирования CRISPR/Cas9 для оценки потенциального эффекта от различных аллельных вариантов генетического локуса, начинающая активно применяться в области моделирования механизмов развития психических расстройств [29], обладает перспективой для оценки функциональной значимости выявленных генетических локусов в дальнейших исследованиях молекулярно-генетических основ АП.
Заключение
Таким образом, в рамках работы среди русских из ВУР были подтверждены ассоциации трех генетических локусов в генах днРНК и казеинкиназы 1, ранее идентифицированные в метаанализе GWAS антисоциального поведения. Причем также был отмечен значимый эффект табакокурения на ассоциацию локуса в гене CSNK1G2 с манифестацией крайних форм АП. В то же время для татар характер ассоциации локуса rs4714329 в гене LINK00951 с АП был противоположным, в связи с этим необходимо увеличить размер выборки лиц с АП для верификации выявленной низкой частоты аллеля rs4714329*G.
Исследование выполнено в рамках государственного задания №1022040500074-9.
The study was conducted as part of the State Assignment No. 1022040500074-9.
Авторы заявляют об отсутствии конфликта интересов.
1https://www.internationalgenome.org, дата обращения 01.07.2025.
- Manchia M, Fanos V. Targeting Aggression in Severe Mental Illness: The Predictive Role of Genetic, Epigenetic, and Metabolomic Markers. Prog Neuropsychopharmacol Biol Psychiatry. 2017;77:32-41. https://doi.org/10.1016/j.pnpbp.2017.03.024
- Rosell DR, Slifstein M, Thompson J, et al. Serotonin transporter availability in physically aggressive personality disordered patients: associations with trait and state aggression, and response to fluoxetine. Psychopharmacology (Berl). 2023;240(2):361-371. https://doi.org/10.1007/s00213-022-06306-2
- Davydova YD, Kazantseva AV, Enikeeva RF, et al. The role of oxytocin receptor (OXTR) gene polymorphisms in the development of aggressive behavior in healthy individuals. Russ J Genet. 2020;56(9):1129-1138. https://doi.org/10.1134/S1022795420090057
- Mustafin RN, Kazantseva AV, Enikeeva RF, et al. (2019): Epigenetics of aggressive behavior. Russ J Genet. 2019;55(9):1051-1060. https://doi.org/10.1134/S1022795419090096
- Kazantseva A, Bilyalov A, Filatov N, et al. Genetic Contributions to Aggressive Behaviour in Pigs: A Comprehensive Review. Genes (Basel). 2025;16(5):534. https://doi.org/10.3390/genes16050534
- Tielbeek JJ, Uffelmann E, Williams BS, et al. Uncovering the genetic architecture of broad antisocial behavior through a genome-wide association study meta-analysis. Mol Psychiatry. 2022;27(11):4453-4463. https://doi.org/10.1038/s41380-022-01793-3
- Rautiainen MR, Paunio T, Repo-Tiihonen E, et al. Genome-wide association study of antisocial personality disorder. Transl Psychiatry. 2016;6(9):e883. https://doi.org/10.1038/tp.2016.155
- Karlsson Linnér R, Mallard TT, Barr PB, et al. Multivariate analysis of 1.5 million people identifies genetic associations with traits related to self-regulation and addiction. Nat Neurosci. 2021;24(10):1367-1376. https://doi.org/10.1038/s41593-021-00908-3
- Pappa I, St Pourcain B, Benke K, et al. A genome-wide approach to children’s aggressive behavior: The EAGLE consortium. Am J Med Genet B Neuropsychiatr Genet. 2016;171(5):562-572. https://doi.org/10.1002/ajmg.b.32333
- Kazantseva AV, Davydova YD, Enikeeva RF, et al. The association study of polymorphic variants of hypothalamic-pituitary-adrenal system genes (AVPR1B, OXTR) and aggressive behavior manifestation: a focus on social environment. Research Results in Biomedicine. 2021;7(3):232-244. https://doi.org/10.18413/2658-6533-2021-7-3-0-3
- Kazantseva AV, Davydova YD, Enikeeva RF, et al. Individual variance in human aggression: a combined effect of polygenic score and social/lifestyle factors. Russ J Genet. 2023;59(S.2):S227-S236. https://doi.org/10.1134/s1022795423140065
- Borinskaya SA, Rubanovich AV, Larin AK, et al. Epigenome-Wide Association Study of CpG Methylation in Aggressive Behavior. Russ J Genet. 2021;57(12):1454-1460. https://doi.org/10.1134/S1022795421120048
- Ruisch IH, Dietrich A, Glennon JC, et al. Interplay between genome-wide implicated genetic variants and environmental factors related to childhood antisocial behavior in the UK ALSPAC cohort. Eur Arch Psychiatry Clin Neurosci. 2019;269(6):741-752. https://doi.org/10.1007/s00406-018-0964-5
- Leutgeb V, Wabnegger A, Leitner M, et al. Altered cerebellar-amygdala connectivity in violent offenders: A resting-state fMRI study. Neurosci Lett. 2016;610:160-164. https://doi.org/10.1016/j.neulet.2015.10.063
- Fanelli G, Franke B, Fabbri C, et al. Local patterns of genetic sharing between neuropsychiatric and insulin resistance-related conditions. Transl Psychiatry. 2025;15(1):145. https://doi.org/10.1038/s41398-025-03349-9
- Vrkić Boban I, Sekiguchi F, Lozić M, et al. A Novel SETBP1 Gene Disruption by a De Novo Balanced Translocation in a Patient with Speech Impairment, Intellectual, and Behavioral Disorder. J Pediatr Genet. 2020;11(2):135-138. https://doi.org/10.1055/s-0040-1715639
- Walss-Bass C, Escamilla MA, Raventos H, et al. Evidence of genetic overlap of schizophrenia and bipolar disorder: linkage disequilibrium analysis of chromosome 18 in the Costa Rican population. Am J Med Genet B Neuropsychiatr Genet. 2005;139B(1):54-60. https://doi.org/10.1002/ajmg.b.30207
- Du G, Jiang Z, Xia T, et al. lincRNA00907 promotes NASH progression by targeting miRNA-942-5p/TAOK1. Aging (Albany NY). 2024;16(8):6868-6882. https://doi.org/10.18632/aging.205730
- Pan J, Lin H, Yang T, et al. lncRNA-uc003opf.1 rs11752942 A>G polymorphism decreases neuroblastoma risk in Chinese children. Cell Cycle. 2020;19(18):2367-2372. https://doi.org/10.1080/15384101.2020.1808382
- Statello L, Guo CJ, Chen LL, et al. Gene regulation by long non-coding RNAs and its biological functions. Nat Rev Mol Cell Biol. 2021;22(2):96-118. https://doi.org/10.1038/s41580-020-00315-9
- Roy B, Verma AK, Funahashi Y, et al. Deciphering the epigenetic role of long non-coding RNAs in mood disorders: Focus on human brain studies. Clin Transl Med. 2025;15(3):e70135. https://doi.org/10.1002/ctm2.70135
- Pishva E, van den Hove DLA, Laroche V, et al. Genome-wide DNA methylation analysis of aggressive behaviour: a longitudinal population-based study. J Child Psychol Psychiatry. 2023;64(7):998-1006. https://doi.org/10.1111/jcpp.13782
- Hoffmann LB, Li B, Zhao Q, et al. Chronically high stress hormone levels dysregulate sperm long noncoding RNAs and their embryonic microinjection alters development and affective behaviours. Mol Psychiatry. 2024;29(3):590-601. https://doi.org/10.1038/s41380-023-02350-2
- Aragam N, Wang KS, Anderson JL, Liu X. TMPRSS9 and GRIN2B are associated with neuroticism: a genome-wide association study in a European sample. J Mol Neurosci. 2013;50(2):250-256. https://doi.org/10.1007/s12031-012-9931-1
- Chang K, Jian X, Wu C, et al. The Contribution of Mosaic Chromosomal Alterations to Schizophrenia. Biol Psychiatry. 2025;97(2):198-207. https://doi.org/10.1016/j.biopsych.2024.06.015
- Rossi L, Nardecchia F, Pierigè F, et al. Intellectual Disability and Brain Creatine Deficit: Phenotyping of the Genetic Mouse Model for GAMT Deficiency. Genes (Basel). 2021;12(8):1201. https://doi.org/10.3390/genes12081201
- Weltens I, Bak M, Verhagen S, et al. Aggression on the psychiatric ward: Prevalence and risk factors. A systematic review of the literature. PLoS One. 2021;16(10):e0258346. https://doi.org/10.1371/journal.pone.0258346
- van Goozen SHM, Langley K, Hobson CW. Childhood Antisocial Behavior: A Neurodevelopmental Problem. Annu Rev Psychol. 2022;73:353-377. https://doi.org/10.1146/annurev-psych-052621-045243
- Давыдова Ю.Д., Казанцева А.В., Хуснутдинова Э.К. Перспективы использования системы геномного редактирования CRISPR/CAS9 для изучения молекулярно-генетических основ психических расстройств. Журнал неврологии и психиатрии им. С.С. Корсакова. 2024;124(3):27-33. https://doi.org/10.17116/jnevro202412403127
Рекомендуем статьи по данной теме:
Особенности локальной и системной продукции основных цитокинов иммунного ответа при эпителиальных опухолях слезной железы.Вестник офтальмологии. 2026;142(5):38-47
Оптимизация диагностики уросепсиса: обоснование включения экспрессии гена ИЛ-6 в диагностический алгоритм.Анестезиология и реаниматология. 2026;(5):47-52
Оценка уровня циркулирующих в крови микровезикул при ишемическом инсульте.Журнал неврологии и психиатрии им. С.С. Корсакова. Спецвыпуски. 2026;126(8-2):23-27
Механизмы и морфопатофизиологические уровни эпилептогенеза.Журнал неврологии и психиатрии им. С.С. Корсакова. 2026;126(8):5-12
Перспективные методы лечения нейросенсорной тугоухости: клеточные технологии.Вестник оториноларингологии. 2026;91(3):100-106
Анестезиологическое обеспечение кардиохирургических операций высокого риска.Анестезиология и реаниматология. 2026;(3):96-101
Длиннолатентные слуховые вызванные потенциалы как биомаркеры созревания центральных отделов слуховой системы у детей в норме и при патологии: обзор литературы.Вестник оториноларингологии. 2026;91(2):84-96
Болезнь Альцгеймера: диагностические критерии и их эволюция.Журнал неврологии и психиатрии им. С.С. Корсакова. Спецвыпуски. 2026;126(4-2):29-39
Ассоциация гематологических коэффициентов воспаления с использованием липопротеинов высокой плотности в оценке тяжести расстройств настроения.Журнал неврологии и психиатрии им. С.С. Корсакова. 2026;126(2):116-122
Эпигенетическая регуляция в плаценте при нарушенной инвазии трофобласта (обзор литературы).Проблемы репродукции. 2024;30(6):45-54