Сравнительная характеристика сообществ микроорганизмов поверхностных вод бухт прибрежной акватории Японского моря, подверженных антропогенному воздействию
Журнал: Молекулярная генетика, микробиология и вирусология. 2025;43(3):36-46.
DOI: 10.17116/molgen20254303136
Прочитано: 995 раз
Резюме
Исследование сообществ микроорганизмов является первостепенной задачей при оценке экологического состояния атмосферы, гидросферы и биосферы в целом. Наибольший интерес вызывают сообщества, расположенные вблизи от мест человеческой деятельности: городов, фабрик и морских портов. Исследование микробных сообществ бухт Приморского края в данный момент не является всеобъемлющим, поскольку его объектами становились в основном ближайшие к Владивостоку бухты и заливы, в то время как акватории, расположенные севернее по побережью, исследовались недостаточно или не исследовались вовсе. В настоящей работе представлены новые результаты исследования состава микробиоты десяти бухт и заливов Приморского края. Были выявлены основные доминанты, факторы среды, воздействующие на микробные популяции, а также их функциональные особенности, которые не только влияют на процессы формирования бактериальных сообществ, но и участвуют в обеспечении функционирования экосистем в целом. Экспедиционные исследования на судне «Пилигрим» являются первым реализованным мероприятием «Дорожной карты» (2024—2028 гг.) между НИЦ «Курчатовский институт» и ТОИ ДВО РАН. Полученные результаты перспективны для исследований в соответствии с Указом Президента Российской Федерации от 02.11.2023 №818 «О развитии природоподобных технологий в Российской Федерации».
Ключевые слова
- микробиом
- Японское море
- экспедиционные исследования
- секвенирование ДНК
- биоинформатический анализ
- метагеномика
Дата поступления: 31.03.2025
Дата принятия в печать: 06.05.2025
Дата публикации: 02.10.2025
Введение
Известно, что морские микроорганизмы обладают множеством экосистемных функций, включая первичное производство органического вещества из неорганического, участие в круговороте питательных элементов, кислорода, углерода, азота и др., участие в процессах самоочищения водной среды. Названные процессы и их масштабы определяются составом микробных сообществ [1].
В прибрежной зоне, в наибольшей степени подверженной антропогенному и техногенному воздействию в результате хозяйственной деятельности и социальной активности населения, морские акватории отличаются повышенной степенью загрязненности различными токсикантами и ксенобиотиками, что влияет на изменения в видовом и численном составе микробных сообществ. Наибольшую экологическую угрозу в морской среде представляют сегодня нефтеуглеводороды, фенолы, тяжелые металлы и органические загрязнители.
Микроорганизмы, первыми реагируя на возникающие в результате загрязнений экосистемные дисбалансы, служат их индикаторами. Кроме того, в зависимости от видов загрязнений, в различных прибрежных акваториях происходит формирование специфических сообществ гетеротрофных микроорганизмов, обладающих способностью к деструкции тех или иных чуждых среде элементов, что служит восстановлению нарушенного экосистемного баланса.
Северо-западная часть побережья Приморского края, омываемого Японским морем, характеризуется высоким уровнем антропогенного воздействия, наиболее выраженного в зоне бассейна залива Петра Великого, где отмечается повышенный уровень загрязнения, в первую очередь, нефтепродуктами и фенолами. В то же время уровень изученности микробиома и микробных консорциумов акваторий данного региона, особенно с использованием геномных методов анализа, в литературе оценивается как низкий. Этим определяется повышенный интерес к исследованиям видового и численного соотношения в локальных микробных консорциумах, изучению адаптивного механизма микроорганизмов к изменению условий среды, обнаружению новых эндемичных и аборигенных штаммов микроорганизмов и оценке их метаболического потенциала.
Получение новых сведений о микроорганизмах, специфичных для определенных местообитаний с антропогенно измененной средой и способных к деструкции и утилизации локальных видов загрязнителей, играет важную роль в разработке новых методов экологического мониторинга, технологий и средств эффективной биоремедиации соответствующих морских акваторий.
Северо-западная часть побережья Приморского края, омываемого Японским морем, характеризуется высокой концентрацией урбанизированных территорий, портовой и транспортной инфраструктуры, объектов производственной, хозяйственной и социальной активности, что приводит к значительному антропогенному загрязнению прибрежной территории и морских акваторий. Наибольший экологический пресс, согласно оценкам [2, 3], испытывает зона бассейна зал. Петра Великого. На данной территории, составляющей менее 1% общей площади Тихоокеанской береговой зоны, сосредоточен 41% населения региона, показатель атмосферных выбросов от стационарных источников загрязнения составляет около 30%, сброс загрязненных сточных вод достигает 70%, причем по отдельным загрязняющим веществам в составе сточных вод до 80% сбросов во всем регионе связано с предприятиями, расположенными именно в бассейне залива Петра Великого [2]. Основными же загрязняющими веществами во всех акваториях зал. Петра Великого, представляющими угрозу морским биоценозам и здоровью населения, являются нефтяные углеводороды и фенолы, концентрация которых заметно возрастает в местах активного судоходства. Не меньшую опасность представляют также тяжелые металлы, хлорорганические пестициды, синтетические и анионные поверхностно-активные вещества, а также различные органические и биогенные элементы. Все эти вещества как наиболее распространенные в исследуемом районе входят в перечень приоритетных в системе государственного мониторинга и при проведении научных исследований [3].
Указанные загрязнители оказывают комплексное повреждающее воздействие на морскую среду, вызывая изменения в структуре биоценозов. Микроорганизмы, благодаря своим уникальным физиолого-биохимическим и генетическим особенностям, первыми реагируют на возникающие экосистемные дисбалансы и служат их индикаторами. С помощью биоиндикации с использованием микроорганизмов проводят оценку качества среды, определяют уровень и характер ее загрязнения многими ксенобиотиками химического и биологического происхождения, оценивают тенденции происходящих в экоосистемах изменений и проводят экологическое картирование [4, 5].
Для северо-западного побережья Японского моря характерна неравномерность изученности морских акваторий. Многие экологические особенности состояния морской среды и биоты достаточно хорошо исследованы и получили широкое освещение в научной литературе, в то же время таксономический и функциональный состав морской микробиоты и микробных сообществ, населяющих прибрежную зону Японского моря и участвующих в самоочищении экосистемы, остаются малоизученным. Крайне ограничены и фрагментарны данные, полученные с применением геномных методов исследований в части морской метагеномики, генетических и биоинформатических исследований прокариотических сообществ. Исследования в данном направлении выходят сегодня на первый план в поисках эффективных способов восстановления нарушенных морских экосистем и биоценозов за счет использования адаптивного потенциала микроорганизмов, реализуемого в условиях антропогенно измененной окружающей среды. Для изучения механизмов такой адаптации и разработки новых, более эффективных методов биоремедиации загрязненных морских акваторий особую актуальность приобретают исследования эндемичных и аборигенных штаммов в местах наибольшей хозяйственной и социальной активности населения.
Это связано с тем, что видовые особенности и состав микробных сообществ, формирующийся под воздействием локальных условий среды, основывается на уникальных механизмах адаптации микроорганизмов к воздействию загрязнителей в месте их обитания, что позволяет им выдерживать высокие концентрации тяжелых металлов, окислять различные виды нефтеуглеводородов, гидролизовать органические вещества. Причем, как было установлено [6], микроорганизмы, выделенные из акваторий с разной степенью и характером загрязнения, отличаются способностью выдерживать высокие концентрации местных загрязнителей. Этим объясняют целесообразность использования в целях биоремедиации в каждом конкретном регионе аборигенных штаммов микроорганизмов, приспособленных к определенным экологическим условиям [7].
Существенный вклад в понимание механизмов формирования морского микробиома в различных условиях среды сделан недавно опубликованной работой [1], посвященной изучению факторов влияния на формирование структуры локальных микробных сообществ, места и роли в них эндемичных штаммов микроорганизмов. В рамках работы были исследованы 445 приповерхностных образцов воды в географически различных точках региона Южной Калифорнии, проведена классификация обнаруженных таксонов по степени распространенности на эндемичные, космополитичные и универсальные и сделаны некоторые выводы относительно обусловленности их ареала обитания в прибрежно-морском микробиоме. Было показано следующее распределение: 20% таксонов демонстрировали эндемичные ареалы, 30% — космополитные ареалы и 50,3% таксонов были универсальными. Типологию таксонов авторы производили по результатам секвенирования и сравнительного анализа 16S рРНК. Значимость опубликованных данных определяется, в частности, тем, что, как отмечается в работе, до настоящего времени ни в одном исследовании морского микробиома не была произведена количественная оценка относительной частоты эндемичного и других типов ареалов распространения среди микроорганизмов. Результаты исследований подтвердили, что пространственное видовое распределение, определяющее состав локальных микробных сообществ, зависит от биогеографических (донный ландшафт, волнение моря, сильные течения, приток воды и т.д.) и средовых особенностей (температура, соленость, питательные вещества), а также от преобладания биогенных (водный, воздушный) или антропогенных путей расселения. Сделано заключение об особой роли, которую эндемичные микроорганизмы играют в биоценозах, испытывающих сильные антропогенные загрязнения. Так, под угнетающим воздействием сильных токсикантов происходит адаптация микроорганизмов к ксенобиотикам и токсикантам за счет спонтанных генетических мутаций, влияющих на структурные, метаболические и другие изменения, обусловливающие появление способности микроорганизма к деструкции характерных для конкретного местообитания загрязнителей. Благодаря возможности использовать их в качестве питательного субстрата штаммы-эндемики занимают появившуюся в результате негативного антропогенного воздействия новую экологическую нишу в биоценозе и способствуют его восстановлению [5]. Авторы [1] пришли к выводу, что в морской среде за счет высокой численности популяции, демографической стохастичности и быстрого расселения под воздействием средовых факторов у микроорганизмов, как наиболее пластичных компонентов биоценоза, увеличиваются темпы генетических изменений и отбора в ответ на загрязнения, что ускоряет появление эндемичных штаммов и формирование региональных различий в структуре сообществ по сравнению с наземными организмами.
В подтверждение данных выводов, как сообщается [8], в 2023 г. ученые Дальневосточного федерального университета (ДВФУ) обнаружили в Японском море способные к нефтеокислению бактерии, для которых подобные свойства ранее не были известны. Было найдено 12 видов нефтедеструкторов, включая Cobetia, Idiomarina maritima, Gracilibacillus, Lechevaleria, Jeotgalibacillus marinus и др. Изучение геномов этих микроорганизмов позволит оценить их метаболический потенциал и выявить гены, ответственные за деградацию различных углеводородов. В дальнейшем на основе выявления наиболее активных природных нефтедеструкторов планируется создание эффективных биопрепаратов для очистки Японского моря от нефтезагрязнений и разработка новых методов мониторинга нефтяного загрязнения морских вод. В то же время в публикации [7] авторы отмечают недостаточную освещенность в современной научной литературе вопросов таксономического разнообразия в поверхностных прибрежных водах Японского моря и залива Петра Великого региона, отсутствие глубоких исследований метаболического потенциала микроорганизмов, способных к окислению нефтеуглеводородов (Alcanivorax, Pseudomonas aeruginosa, Sphingomonas subarctica, Cycloclasticus pugetii).
Таким образом, принимая во внимание широкие перспективы хозяйственного освоения Приморского края, можно сделать вывод о высокой актуальности задачи по получению и накоплению исследовательских данных, полученных, в первую очередь, методами секвенирования и биоинформатического анализа, относительно состава и характеристик эндемичных сообществ прокариот бухт залива Петра Великого и Приморского края в целом, причем как загрязненных, так и незагрязненных нефтепродуктами и другими ксенобиотиками.
Отбор проб
Отбор проб морской воды проводили в летний период, с 18 по 25 августа 2023 г., во время кругосветного плавания на парусном судне «Пилигрим», на этапе прохождения вдоль участка побережья протяженностью 474 км, от залива Опричник до города Владивосток (Уссурийский залив). Пробы отбирали на станциях, расположенных вдоль побережья Японского моря, в следующих 10 объектах: залив Опричник (44.442533, 136.014100), бухта Северная (43.927217, 135.488100), бухта Немая (43.298983, 134.731167), бухта Красная скала (43.257550, 134.649117), бухта Кит (43.049533, 134.185433), бухта Соколовская (42.889967, 133.878233), бухта Преображение (42.893500, 133.900067), бухта Спокойная (42.713367, 133.179983), бухта Находка (42.758711, 132.882004), Уссурийский залив (42.900414, 132.110106). Расположение, координаты и связанные с точками географические объекты представлены на рис. 1, см.https://mediasphera.ru/upload/medialibrary/files/Mol_genetika_2025_03_039_add.zip.
Отбор проб производили в дрейфе, в условиях отключенного двигателя, спущенных парусов и стационарности относительно координат точки отбора. Пробы отбирали с поверхностного слоя (10—30 м) с помощью батометра системы Нискин объемом 2 л. Батометр промывали дистиллированной водой и 70% спиртом. Затем пробы фильтровали через фильтр с диаметром пор 0,22 мкм с использованием шприца. Средняя длительность фильтрации составляла 1 ч. После фильтрования шприцы и трубки стерилизовали дистиллированной водой и 70% спиртом, корпус фильтра кипятили в воде в течение 30 мин. Непосредственно фильтр помещали в стерильную емкость и хранили в холодильной камере при температуре 5—13 °C.
Выделение и исследование генетического материала
Для выделения бактериальной ДНК каждый фильтр измельчали с помощью гомогенизатора TissueRaptor в PBS буфере. Полученную суспензию центрифугировали при 3500 g и 4 °C в течение 10 мин, извлекали супернатант. Тотальное выделение ДНК проводили с использованием набора реагентов DNeasy Plant Pro Kit (Qiagen, США), в соответствии с протоколом, рекомендованным производителем.
Чтение последовательностей ДНК производили путем секвенирования, после чего проводили биоинформатический анализ по 16S рРНК.
Были составлены графики распространения доминантных филумов и родов прокариот, кроме того были получены теоретические данные о характере локальных микробных сообществ и функциональных особенностях обнаруженных доминантных родов бактерий, отображенные в диаграмме распределения основных функций по точкам пробоотбора. На основании сопоставления полученных гидрологических данных с биологическими сделаны выводы о характере влияния экологических и антропогенных факторов на распространение прокариотических сообществ в указанных локализациях.
Географическое положение
Исследуемые в работе акватории расположены в северо-западной части Японского моря. Бухты Северная, Немая, Красная скала, Кит, Соколовская, Преображение, Спокойная и залив Опричник находятся на восточном побережье Приморья. Уссурийский залив и бухта Мусатова (в заливе Находка) являются частью залива Петра Великого.
Район исследования характеризуется большим разнообразием типов берегов, прибрежных грунтов, гидрологического режима и физико-химических условий среды [7, 9].
Залив Опричник вдается в берег между м. Рифовый и м. Сигнальный. Западный и восточный берега залива возвышенные и скалистые, а северный — низкий и песчано-галечный [9—11].
Бухта Северная является частью залива Владимира, который представляет собой полузакрытый водоем, расположенный в центральной части северного Приморья.
Бухта Немая расположена к северо-востоку от м. Горбатый. Входные мысы бухты высокие, скалистые и обрывистые.
Бухта Красная скала вдается в берег на расстоянии 1,93 км к северо-востоку от м. Красная скала. Мысы при входе в бухту возвышенные и скалистые, а северо-западный берег находится в низине и обрамлен песчано-галичным пляжем.
Бухта Кит вдается в берег между м. Кит и м. Красный. Западный берег бухты сравнительно низкий, песчано-галечный.
Бухты Кит и Соколовская находятся на территории Лазовского государственного природного биосферного заповедника им. Капланова.
Бухта Соколовская вдается в берег между о. Петрова и м. Овсянкина. Северо-западный и восточный берега бухты скалистые. В восточный берег бухты Соколовская глубоко вдается бухта Преображение, у входа в которую лежит о. Орехова. Скалистые мысы, выступающие в северо-западную часть бухты Соколовская, окаймлены рифами.
К берегам бухты Спокойная подходят высокие горы. Северный берег бухты низкий. Западный берег прорезан ручьем.
Бухта Мусатова расположена в юго-западной части залива Находка (залив Петра Великого). Бухта со всех сторон защищена сопками от сильных ветров, а о. Лисий защищает ее от морских волн.
Уссурийский залив занимает северо-восточную часть залива Петра Великого и является самой большой его внутренней акваторией [12].
Для Уссурийского залива характерен интенсивный водообмен с открытой частью залива Петра Великого [13, 14]. Кроме того, для теплого периода года большое значение имеют прогрев вод и сгонно-нагонные эффекты [15].
Климат, температурный и гидрологический режим
Климат северо-западной части Японского моря характеризуется как умеренный муссонный и оказывает непосредственное влияние на состояние водных ресурсов, функциональные характеристики природных экосистем и микробных сообществ. Основными климатообразующими воздушными массами являются континентальный и морской умеренный воздух. В начале лета метеорологические условия зависят от циркуляционных особенностей и теплового состояния Охотского моря (охотоморский вынос). Во вторую половину лета термический контраст сглаживается, и над Японским морем преобладает довольно сухая погода [9]. Большую часть года воды Японского моря находятся под воздействием низких температур. Средняя годовая температура поверхностного слоя воды в северо-западной части Японского моря изменяется от 5,8 °C на севере до 9,1 °C на юге района. Низкие температуры снижают скорость прохождения биологических процессов, например, биоразложения нефти из-за уменьшения растворимости ее компонентов [7].
На локальные различия в температурных условиях поверхностных вод Японского моря влияют два течения внутренней циркуляции — холодное Приморское и теплое Цусимское. В результате северная часть моря в зимний период замерзает и покрывается льдом, в отличие от южной, незамерзающей. В зоне зал. Петра Великого вследствие особенностей комбинированного воздействия этих двух течений (Приморского и западной ветви Цусимского) в последние два десятилетия наблюдается изменение климатического режима в сторону потепления.
Летом термическое расслаивание вод сопровождается распреснением поверхностного слоя, при этом, например, Уссурийский залив на поверхности имеет соленость около 33‰. В мелководных заливах и бухтах под влиянием речного стока она может снижаться до 27—29‰, а в период ливневых дождей — еще до меньших значений [16—18].
К значимым природно-климатическим факторам, влияющим на состояние морских прибрежных акваторий, некоторые авторы относят также интенсивность волнового воздействия и ветровое перемешивание вод, которые находятся в прямой зависимости от местных метеорологических показателей. Характерные для данного региона устойчивые ветры создают условия для сгонно-нагонных явлений с подъемом уровня воды на 20—30 см.
Помимо особенностей природно-климатических и физико-географических условий, к важнейшим факторам влияния на биоразнообразие северо-западной части Японского побережья относится антропогенное воздействие, связанное с процессами урбанизации и плотностью населения прибрежных территорий, а также с активным судоходством, индустриализацией и развитием туризма [7]. Наибольшему антропогенному влиянию подвержена юго-восточная часть побережья Приморского края, однако наряду с антропогенно преобразованными районами, здесь встречаются и морские акватории с благополучным состоянием среды. Прибрежная зона южного Приморья, омываемая заливом Перта Великого, относится к наиболее густонаселенным районам с хорошо развитой хозяйственной инфраструктурой. Морская среда вблизи городов Владивосток и Находка, согласно экспертным оценкам [1, 7], подвергнута особенно высокому антропогенному прессу.
Результаты и обсуждение
В ходе исследования были определены гидрохимические характеристики морской воды в указанных выше станциях забора проб, показавшие их некоторую неоднородность (табл. 1).
Таблица 1. Основные гидрохимические характеристики воды в точках забора проб
№ п/п | Точка пробоотбора | Температура, °C | Содержание O2, мл/л | Соленость, ‰ | pH |
1 | Залив Опричник | 18,85 | 5,94 | 32,456 | 7,96 |
2 | Бухта Северная | 17,86 | 5,96 | 33,576 | 7,96 |
3 | Бухта Немая | 19,02 | 5,95 | 33,432 | 7,94 |
4 | Бухта Красная Скала | 19,02 | 5,95 | 32,432 | 7,94 |
5 | Бухта Кит | 19,02 | 5,95 | 33,432 | 7,94 |
6 | Бухта Соколовская | 19,02 | 5,95 | 33,432 | 7,94 |
7 | Бухта Преображение | 19,02 | 5,95 | 33,432 | 7,94 |
8 | Бухта Спокойная | 20,22 | 5,6 | 33,274 | 7,94 |
9 | Залив Находка | 19,2 | 5,5 | 31,67 | 8,1 |
10 | Уссурийский залив | 20,62 | 5,51 | 32,693 | 8,2 |
Как следует из данных табл. 1, температурные показатели, одинаковые для точек 3—7 (19,02 °C), снижаются до уровня 17,86 °C в бухте Северная, до 18,85 °C в заливе Опричник и повышаются до 19,2 °C в заливе Находка, до 20,22 °C — в бухте Спокойная, и до 20,62 °C — в Уссурийском заливе. В этих трех последних — зал. Находка, б. Спокойная, Уссурийский зал. — вода оказалась наименее насыщенной кислородом: 5,5 мл/л, 5,51 мл/л и 5,6 мл/л, соответственно. Наибольший уровень О2 был обнаружен в бухте Северной — 5,96 мл/л. В остальных точках (1, 3—7) этот показатель носил устойчивый характер 5,94—5,95 мл/л. В заливах Находка и Уссурийский значения pH оказались также отличающимися от других — 8,1 и 8,2, соответственно, при показателе 7,94, характерном для точек 3—8, и 7,96 — в зал. Опричник и б. Северная. Показатель солености воды оказался почти одинаковым (33, 274—33,432‰) в пяти точках (3, 5—8), в зал. Находка вода оказалась заметно менее соленой (31,67‰), еще в двух токах — б. Красная Скала и Уссурийский зал. значения солености составили 32,432‰ и 32,693‰, соответственно.
При анализе результатов секвенирования полученных проб обнаружена неоднородность распределения численности разных родов и филумов прокариот по 10 точкам пробоотбора. Возможно, это связано с факторами окружающей среды, различающимися между бухтами.
В 10 исследуемых акваториях были выделены микроорганизмы, представленные 7 филумами (Pseudomonadota, Bacteroidota, Cyanobacteria, Actinomycetota, Bacillota, Rhodothermaeota) и 27 родами (рис. 2). При анализе результатов секвенирования полученных проб обнаружена неоднородность распределения численности разных родов и филумов прокариот по точкам пробоотбора. Возможно, это связано как с факторами окружающей среды, различающимися между бухтами, так и с преобладающим видом локальных загрязнений антропогенного характера.
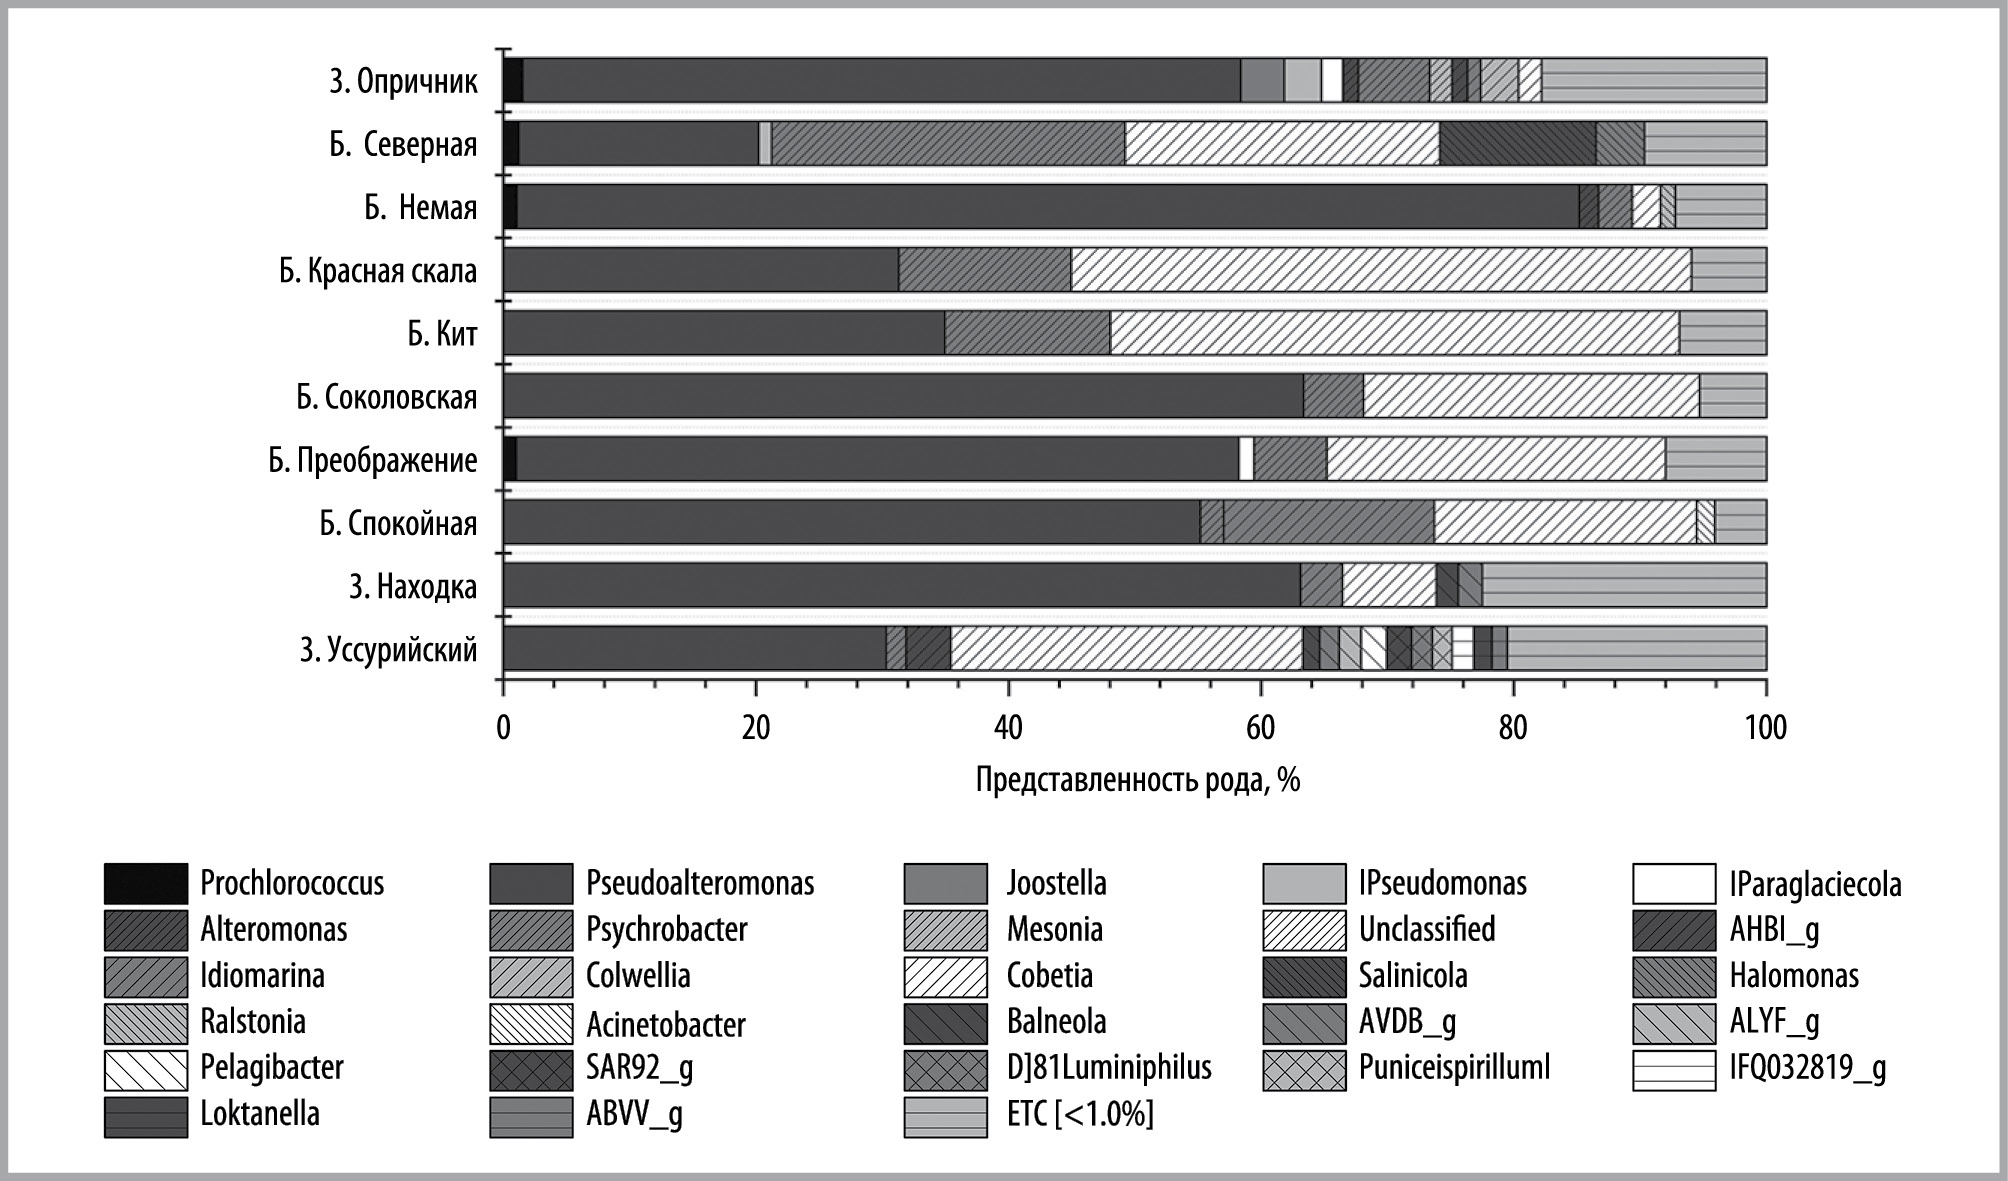
Рис. 2. Диаграмма представленности выделенных родов в точках пробоотбора.
Как было установлено, на всех исследуемых станциях мажорное положение занимает филум Pseudomonadota, типичный для морских акваторий, указывающий на биологическое загрязнение, в миноре оказались филумы Bacteroidota и Actinomycetota. Характерно, что на двух южных станциях, подверженных наибольшему антропогенному воздействию, — в заливах Находка и Уссурийский — филумы Bacteroidota и Actinomycetota, участвующие в разложении органических веществ и играющие важную роль в биогеохимических процессах поддержания целостности морской среды, напротив, продемонстрировали наибольшие значения.
В заливе Опричник было установлено доминирование типичного для северных морей рода Pseudoalteromonas (55,273%), участвующего в биодеградации нефтепродуктов, в то время как другие обнаруженные представители родов, также способные к окислению углеводородов, оказались сильно подавлены: Idiomarina (1,034%), Cobetia (1,839%), Psychrobacter (6,23%). Значительно более высокие показатели, близкие между собой по численности, эти же роды продемонстрировали в б. Северная: Cobetia (24,11%), Psychrobacter (27,544%), при снижении показателя Pseudoalteromonas до 18,677%. Численность родов Psychrobacter (27,544%) и Salinicola (11.919%) достигала своего максимума за время наблюдений, их наличие выявлено и в остальных точках отбора проб. Характерной особенностью рода Salinicola, ранее обнаруженного в солоноватых озерах, как известно, является способность разлагать нафталин (см. рис. 2). Было установлено, что только в данной бухте род Salinicola достигает высоких значений по численности относительно других точек отбора. В данной бухте нами обнаружена также относительно крупная популяция рода Pseudomonas (0,99% при средней численности в 0,66%), представители которого обладают исключительно высокой изменчивостю и адаптацией к изменениям окружающей среды и успешно приспосабливают свои ферментные системы, по мере необходимости, к переработке новых химических соединений. Они способны к утилизации практически всех известных в природе органических веществ, в загрязненных морских акваториях разрушают тяжелые парафины, полиароматические соединения и т.д. [19].
На третьей станции в б. Немая, как было установлено, абсолютного максимума достигает Pseudoalteromonas (82,641%), остальные роды находятся в меньшинстве. Среди последних обращает на себя внимание присутствие рода Ralstonia, который обнаружен только в данной бухте.
Отличительной особенностью бухт Красная скала, Кит и Соколовского, как было установлено, является доминирование 3 родов: Cobetia, Pseudoaleromonas, Psychrobacter. В б. Красная скала своего максимума достигает численность рода Cobetia (47,99%), численность рода Pseudoaleromonas несколько снижена (31,216%), заметно увеличена численность рода Psychrobacter (14,062%), остальные найдены в меньшинстве. Обращает на себя внимание, что обнаруженный в б. Красная скала род Cobetia отличается способностью к разложению, кроме углеводородных, и фосфорорганических соединений [20], поступающих в прибрежную зону с речным стоком с прилегающих полей, обрабатываемых удобрениями.
В б. Кит род Cobetia также преобладает по численности (44,352%), на долю Pseudoalteromonas приходится 34,789%, Psychrobacter — 13,266%.
В б. Соколовская отмечено возрастание численности рода Pseudoalteromonas относительно родов Cobetia и Psychrobacter. Напротив, в б. Преображение численность рода Pseudoalteromonas (56,6%) несколько снижается при незначительном повышении численностей родов Cobetia (26,608%) и Psychrobacter (5,977%). Кроме того, в данной бухте обнаружены Paraglaciecola, и Prochilorococcus. В недавно опубликованном исследовании [21] раскрыт потенциал бактерий Paraglaciecola по выработке ферментов для гидролиза сложных морских полисахаридов, в частности тех, которые содержатся в клеточной стенке красных макроводорослей. Были обнаружены новые, синтезируемые представителями этого рода ферменты, участвующие в гидролизе сложных морских полисахаридов, что расширяет понимание механизмов переработки полисахаридов красных водорослей в морских экосистемах и, кроме того, в перспективе обеспечит новые эффективные ферменты для промышленного производства ряда биопродуктов. Морские цианобактерии Prochlorococcus — самый маленький, и самый многочисленный фотосинтезирующий организм на Земле, производящий до 20% всего атмосферного кислорода. Может производить наноразмерные мембранные пузырьки (тихепозоны), содержащие разнообразные органические вещества и выполняющие разные функции: от удаления токсичных веществ и защиты от вирусов до межклеточной коммуникации и горизонтального переноса генов, отвечающих за адаптацию и усвоение микроорганизмами различных химических элементов. Наибольшую распространенность Prochlorococcus имеет в олиготрофных тропических водах [22].
В б. Спокойная установлено заметное снижение численности рода Pseudoalteromonas (53,135%), Cobetia (20,5%) и Psychrobacter (2,186%). В то же время серия наблюдений подтвердила максимум значений, которые в данной точке достигает род Idiomarina (16,355%). Его присутствие отмечено также в заливах Находка и Опричник. В заливе Находка также наблюдается повышение численности рода Pseudoalteromonas (61,149%), но снижение Cobetia (7,45%) и Idiomarina (3,3%), а Psychrobacter обнаружен в крайнем меньшинстве. В группе малочисленных бактерий также обнаружены представители рода Acinetobacter, которые являются индикаторами хронического загрязнения и относятся к санитарно-показательным микроорганизмам. Примечательно, что в данной точке обнаружены представители филума Actinomycetota, представители которых часто выступают в роли нефтедеструкторов.
В Уссурийском заливе, подвергающемся наибольшему антропогенному влиянию, выявлено резкое снижение численности Pseudoalteromonas (29,65%) и Cobetia (27,28%) и увеличенное присутствие филума Actinomycetota (1,661%). Был также определен род Acinetobacter, характеризующийся высокой ферментативной активностью и участием в процессах разложения большого спектра органических веществ и деструкции углеводородов в широком диапазоне показателей температуры, pH и солености окружающей среды [23]. В Уссурийском заливе было выделено наибольшее разнообразие родов, встречающихся в меньшинстве в других точках отбора проб (см. рис. 2).
Для определения разнообразия прокариот была построена диаграмма Индекса разнообразия Шеннона (рис. 3а) и Симпсона (рис. 3б).
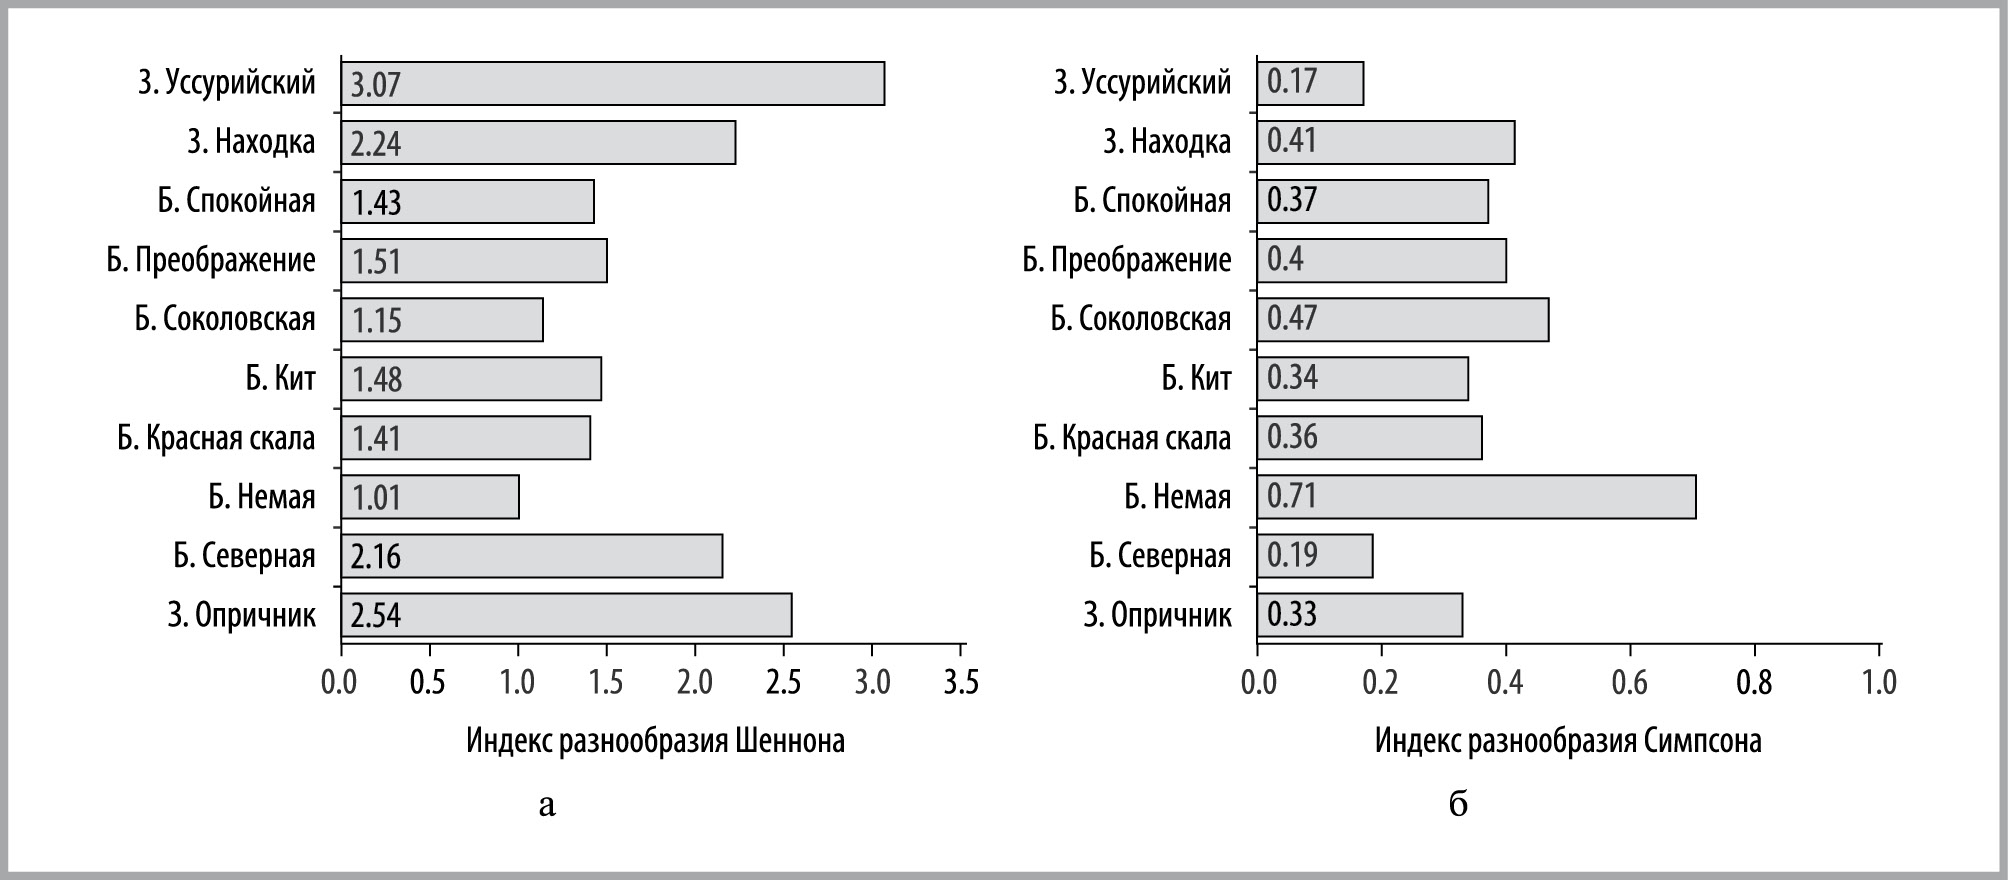
Рис. 3. Диаграмма Индексов разнообразия Шеннона (а) и Симпсона (б).
Сравнение по индексу Шеннона позволило выявить близкие по данному показателю бухты, которые находились в средине маршрута: Немая, Красная скала, Кит, Соколовская, Преображение и Спокойная. Значения индекса в указанных бухтах оказались близки к олигосапробной зоне. Остальные относились к альфа-мезасапробной зоне.
Известно, что при увеличении степени загрязнения в сообществах снижается число доминирующих видов, и остаются виды, наиболее устойчивые к загрязнению. Наибольшее значение индекс Симпсона, позволяющий оценить степень доминирования одних видов над другими, достигает в бухте Немая, а наименьшее — в Уссурийском заливе.
Таким образом, совместное определение индексов Шеннона и Симпсона позволило оценить уровень загрязнения побережья Японского моря и квалифицировать бухту Немая как самую чистую и Уссурийский залив как самый загрязненный.
Анализ бета-разнообразия исследуемых бухт представлен на рис. 4.
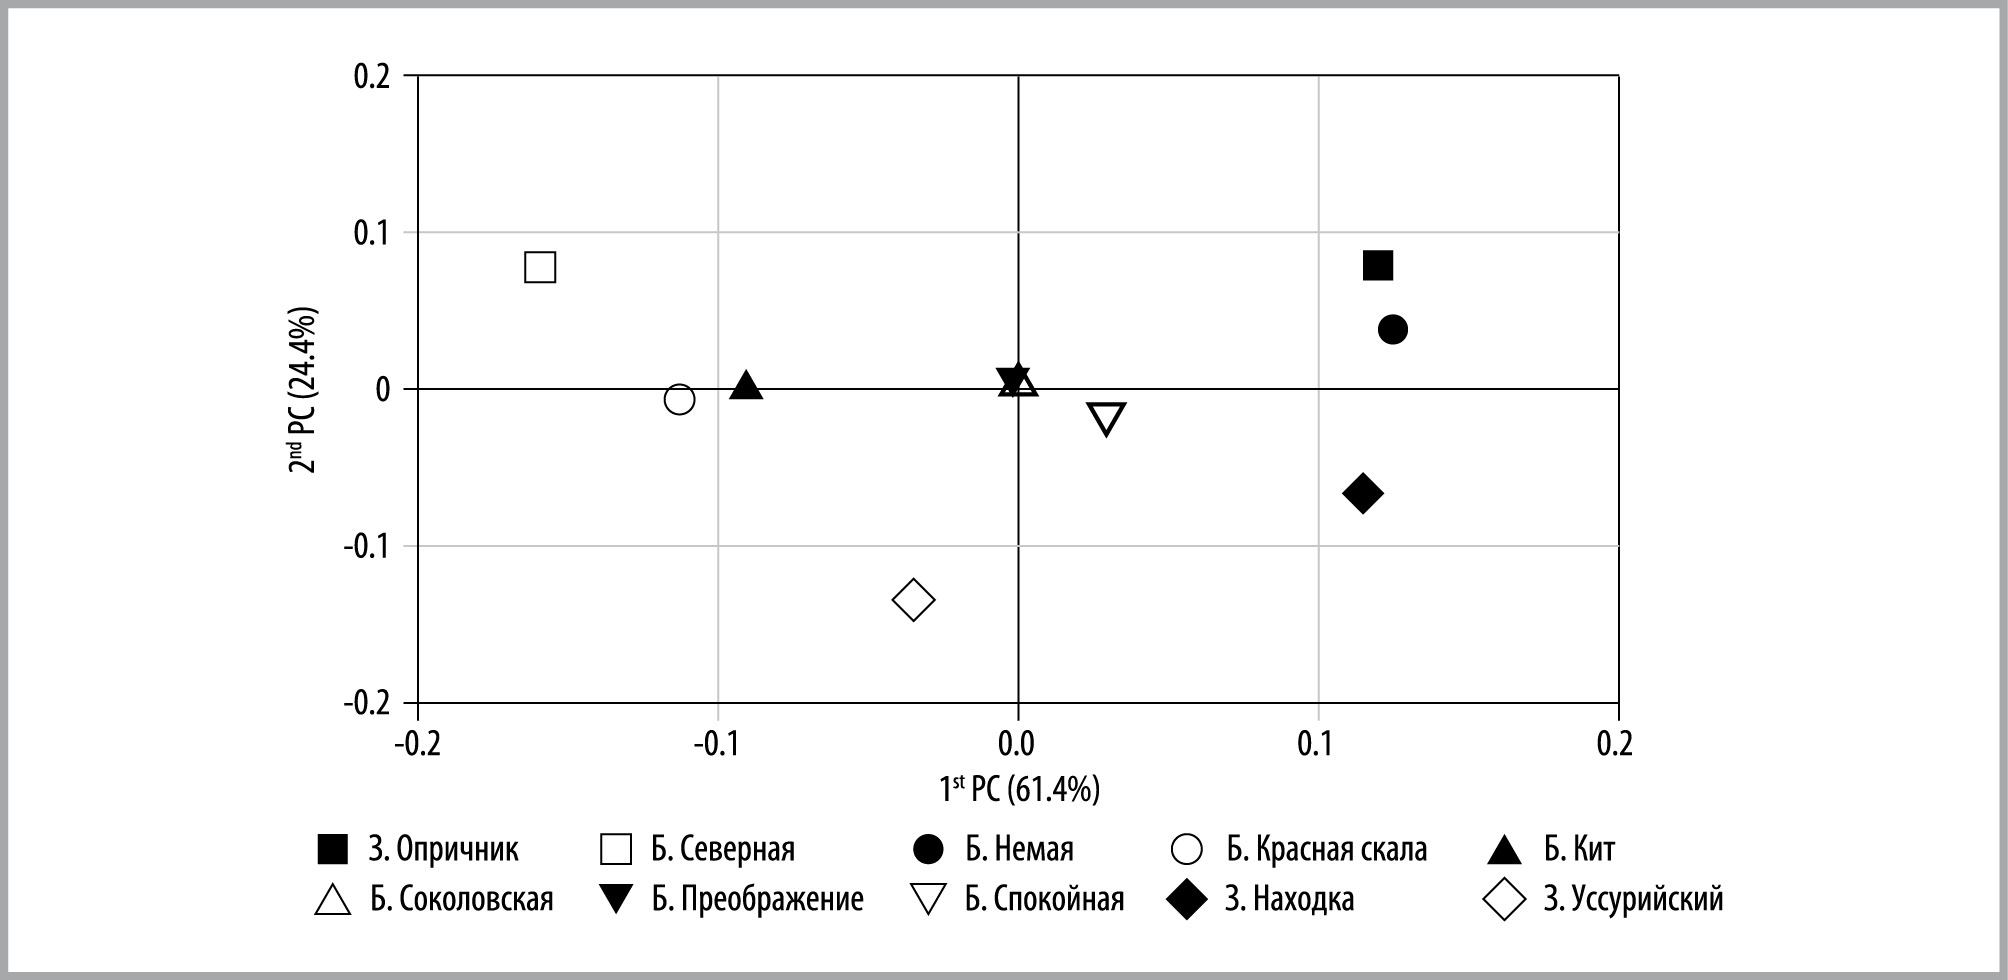
Рис. 4. Бета-разнообразие. 1st PC — первая главная компонента; 2nd PC — вторая главная компонента.
Заключение
По результатам исследования можно сделать вывод о том, что при движении с севера на юг вдоль маршрута корабля из залива Опричник до Уссурийского залива происходит увеличение концентрации загрязняющих веществ, что закономерно сказывается на изменении состояния микробиома. Наибольший индекс разнообразия Шеннона достигается на 10 станции, то есть в Уссурийском заливе, сильно загрязненным балластными водами и нефтепродуктами — богатой питательной средой для роста определенных представителей бактериальных сообществ.
Отличия в составе морского микробиома, обнаруженные в ходе исследования, позволяют каждую из 10 акваторий прибрежной зоны (бухта, залив) рассматривать в качестве отдельной замкнутой экосистемы с характерными для сложившихся средовых условий (естественного и антропогенного характера) комбинациями бактериальных сообществ и доминантными родами.
Дальнейшие исследования с применением геномных методов эндемичных и аборигенных штаммов, проведение оценки их метаболического и функционального потенциала, изучение особенностей структуры локальных микробных сообществ в ранее малоизученных акваториях северо-западной части Японского моря могут быть использованы для создания банка штаммов, разработки новых технологий и продуктов, перспективных для биоиндикации и биоремедиации данного региона.
Экспедиционные исследования на судне «Пилигрим» являются первым реализованным мероприятием «Дорожной карты» (2024—2028 гг.) сотрудничества НИЦ «Курчатовский институт» и ТОИ ДВО РАН. Полученные результаты перспективны для продолжения исследований в целях реализации задач, поставленных Указом Президента Российской Федерации от 02.11.2023 №818 «О развитии природоподобных технологий в Российской Федерации».
Благодарности. Авторы выражают искреннюю признательность экипажу парусного судна «Пилигрим» за обеспечение экспедиционных исследований, руководству НИЦ «Курчатовский институт» и ТОИ ДВО РАН за поддержку работ.
Финансирование. Исследование проведено в рамках выполнения работ по Государственному заданию НИЦ «Курчатовский институт», и Государственному заданию ТОИ ДВО РАН (регистрационный номер: 124022100079-4, 124022100076-3, 124022100078-7).
Соблюдение этических стандартов. Настоящая статья не содержит каких-либо исследований с участием людей или животных в качестве объектов исследований.
Авторы заявляют об отсутствии конфликта интересов.
- James CC, Allen AE, Lampe RH, Rabines A, Barton AD. Endemic, cosmopolitan, and generalist taxa and their habitat affinities within a coastal marine microbiome. Scientific Reports. 2024;14(1). https://doi.org/10.1038/s41598-024-69991-3
- Горбатенко Л.В. Современное состояние окружающей среды береговой зоны Тихоокеанской России. Вестник ДВО РАН. 2017;4:50-60.
- Бадмаев О.В. Содержание фенолов в морской среде прибрежных акваторий залива Петра Великого Японского моря. Известия ТИНРО. 2024; 204(3):609-628. https://doi.org/10.26428/1606-9919-2024-204-609-628
- Бойченко Т.В. Опыт применения методов микробной индикации в оценке качества среды хронически загрязненных морских акваторий. Вестник СВФУ. 2019;2(70):5-13.
- Воловик Е.В. Микроорганизмы — индикаторы загрязнения морей. Материалы VII Международной студенческой научной конференции «Студенческий научный форум». Ссылка активна на 18.02.2025. https://scienceforum.ru/2015/article/2015010099
- Репина (Смирнова) М.А. Автореф. «Нефтеуглеводородокисляющие микроорганизмы прибрежных вод юга острова Сахалин» Дисс. к.б.н. 03.00.16. Сахалинский научно-исследовательский институт рыбного хозяйства и океанографии, Дальневосточный государственный университет МОН РФ. Владивосток, 2009. 22 с.
- Богатыренко Е.А., Ким А.В., Полоник Н.С., Дункай Т.И., Пономарева А.Л., Дашков Д.В. Психотрофные углеводородокисляющие бактерии, выделенные из донных осадков залива Петра Великого Японского моря. Океанология. 2022;62(3):439-450. Ссылка активна на 18.02.2025. https://elibrary.ru/item.asp?id=48412491
- Биологи исследуют, как бактерии Японского моря справляются с загрязнением нефтепродуктами. Ссылка активна на 18.02.2025. https://rscf.ru/news/presidential-program/biologi-issleduyut-kak-bakterii-yaponskogo-morya-spravlyayutsya-s-zagryazneniem-nefteproduktami/?ysclid=m6qebak52418959877
- Ростов И.Д., Рудых Н.И., Лучин В.А., Юрасов Г.И., Жабин И.А., Тихомирова Е.А.и др. Природопользование, состояние и тенденции изменений морской среды прибрежных и сопредельных районов дальневосточных морей России. Владивосток: тихоокеанский океанологический институт им. В.И. Ильичева ДВО РАН. 2013;13. Ссылка активна на 18.02.2025. https://elibrary.ru/item.asp?id=26061366
- Ресурсы поверхностных вод СССР: Гидрологическая изученность. Под ред. Ю.Е. Яблокова. Л.: Гидрометеоиздат; 1970;18(2).
- Лоция №1401 северо-западного берега Японского моря от реки Туманная до мыса Белкина. — СПб.: ГУНиО МО РФ; 2005.
- Подорванова Н.Ф., Ивашинникова Т.С., Петренко В.С., Хомичук Л.С. Основные черты гидрохимии залива Петра Великого (Японское море). Под ред. Н.К. Христофоровой, В.Г. Яричина. Владивосток: ДВО АН СССР; 1989.
- Жабин И.А., Грамм-Осипова О.Л., Юрасов Г.И. Ветровой апвеллинг у северо-западного побережья Японского моря. Метеорология и гидрология. 1993;10: 82-86. Ссылка активна на 18.02.2025. https://elibrary.ru/ubobip
- Галышева Ю.А. Биологические последствия органического загрязнения прибрежных морских экосистем российской части Японского моря. Известия ТИНРО. 2009;158:209-227. Ссылка активна на 18.02.2025. https://cyberleninka.ru/article/n/biologicheskie-posledstviya-organicheskogo-zagryazneniya-pribrezhnyh-morskih-ekosistem-rossiyskoy-chasti-yaponskogo-morya
- Лучин В.А., Сагалаев С.Г. Океанологические условия в Амурском заливе (Японское море) зимой 2005 г. Известия ТИНРО. 2005;143:203-218. Ссылка активна на 18.02.2025. https://cyberleninka.ru/article/n/okeanologicheskie-usloviya-v-amurskom-zalive-yaponskoe-more-zimoy-2005-g
- Бирюлин Г.М., Бирюлина М.Г., Микулич Л.В., Якунин Л.П. Летние модификации вод залива Петра Великого. Тр. ДВНИГМИ. 1970;30:286-299.
- Некоторые региональные последствия антропогенного воздействия на морскую среду. Под ред. А.В. Ткалина. Тр. ДВНИГМИ. Л.: Гидрометеоиздат. 1990;144:108.
- Яричин В.Г. Состояние изученности циркуляции вод Японского моря. Тр. ДВНИГМИ. 1980;80:46-61.
- Ким А.В. Биологическая характеристика морских псевдомонад, выделенных из районов с разной степенью антропогенной назгрузки. Материалы VI Международной студенческой научной конференции «Студенческий научный форум».
- Balabanova L, Bakholdina S, Buinovskaya N, Noskova Yu, Kolpakova O, Vlasova V. et al. LPS-Dephosphorylating Cobetia amphilecti Alkaline Phosphatase of PhoA Family Divergent from the Multiple Homologues of Cobetia spp. Microorganisms. 2024;12(3):631. https://doi.org/10.3390/microorganisms12030631
- Schultz-Johansen M, Bech PK, Hennessy RC, Glaring MA, Barbeyron T, Czjzek M, & Stougaard P. A novel enzyme portfolio for red algal polysaccharide degradation in the marine bacterium Paraglaciecola hydrolytica S66T encoded in a sizeable polysaccharide utilization locus. Frontiers in Microbiology. 2018;9:15. https://doi.org/10.3389/fmicb.2018.00839
- Lindell D. The Genus Prochlorococcus, Phylum Cyanobacteria. In: Rosenberg E. et al. (eds.), The Prokaryotes — Other Major Lineages of Bacteria and the Archaea. Springer-Verlag Berlin Heidelberg. 2014:829-845. https://doi.org/10.1007/978-3-642-38954-2_125
- Коршунова Т.Ю., Кузина Е.В., Шарипов Д.А., Рафикова Г.Ф. Бактерии родов Acinetobacter и Ochrobactrum в процессах биоремедиации нефтезагрязнённых объектов (обзор). Теоретическая и прикладная экология. 2021;(3):13-20. https://doi.org/10.25750/1995-4301-2021-3-013-020


Рекомендуем статьи по данной теме:
Антибиотикотерапия у детей при заболеваниях ЛОР-органов.Российская ринология. 2026;34(1):54-62
Особенности микробиоты слизистой оболочки гортани у пациентов с хроническим гиперпластическим ларингитом (обзор литературы).Вестник оториноларингологии. 2026;91(1):64-69
Роль кишечной микробиоты в процессах старения.Хирургия. Журнал им. Н.И. Пирогова. 2025;(11-2):67-73
Биомаркеры механизмов старения.Вопросы курортологии, физиотерапии и лечебной физической культуры. 2025;102(5-2):108-119
Современные подходы к дактилоскопии микробиома.Молекулярная генетика, микробиология и вирусология. 2025;43(4-2):33-41
Ось «мозг—кишечник—микробиом» при болезни Паркинсона.Журнал неврологии и психиатрии им. С.С. Корсакова. Спецвыпуски. 2025;125(11-2):18-23
Факторы поддержания хронического воспаления при психических заболеваниях.Журнал неврологии и психиатрии им. С.С. Корсакова. 2025;125(8):7-15
Коррекция питания в комплексной терапии и реабилитации посттравматического стрессового расстройства.Профилактическая медицина. 2025;28(2):114-119
Стратификация риска малигнизации внутрипротоковых папиллярных муцинозных опухолей поджелудочной железы.Хирургия. Журнал им. Н.И. Пирогова. 2024;(12):99-104
Микробиота кишечника: роль в здоровье человека и потенциал для персонализированной медицины.Доказательная гастроэнтерология. 2024;13(4):81-88