Чувствительность различных клеточных культур к респираторно-синцитиальному вирусу человека из клинического материала пациента
Журнал: Молекулярная генетика, микробиология и вирусология. 2024;42(2):39-44.
DOI: 10.17116/molgen20244202139
Прочитано: 1372 раза
Резюме
Для изучения патогенеза вирусной инфекции на клеточном уровне представлены результаты анализа взаимодействия респираторно-синцитиального вируса человека (HRSV), полученного из клинического материала от больного, с диплоидной культурой клеток легкого эмбриона человека ЛЭЧ-3 и перевиваемой клеточной линией карциномы HeLa.
ЦЕЛЬ РАБОТЫ
Изучение чувствительности некоторых клеточных культур к HRSV.
МАТЕРИАЛ И МЕТОДЫ
Культуры клеток были взяты из коллекции ФБУН «ФНИИВИ "Виром"» Роспотребнадзора. Клинический штамм вируса HRSV выделен от пациента с диагнозом острой респираторной вируснойинфекции. Чувствительность клеточных культур к этому вирусу изучали по степени цитопатического эффекта. Количественную оценку инфекционных частиц HRSV проводили титрованием вируссодержащей жидкости по методу Рида и Менча, рассчитывая значение показателя 50% тканевой цитопатической дозы (lg ТЦПД50/см3). Также был проведен анализ митотической активности клеток каждой из исследуемых культур, инфицированных супернатантом.
РЕЗУЛЬТАТЫ
При анализе результатов исследования получены доказательства, что клетки ЛЭЧ-3 более чувствительны к HRSV по сравнению с клеточной линией HeLa. Инфекционный титр вируса в фибробластах составил 5,50±0,17, в то время как в эпителиоподобных клетках он составил 3,75±0,04. Кроме того, были обнаружены различия в изменении митотической активности в сравниваемых культурах: в клетках ЛЭЧ-3 наблюдалась стимуляция клеточного деления, в то время как в культуре HeLa, напротив, — угнетение.
ЗАКЛЮЧЕНИЕ
Клеточная культура ЛЭЧ-3 является перспективной для выделения и изучения HRSV.
Ключевые слова
- культура клеток
- респираторно-синцитиальный вирус
- цитопатический эффект
- репродукция
- митотическая активность клеток
Дата поступления: 27.02.2024
Дата принятия в печать: 22.03.2024
Дата публикации: 04.07.2024
Введение
Одним из наиболее распространенных патогенов во всем мире является респираторно-синцитиальный вирус человека (human respiratory syncytial virus — HRSV) [1]. Он вызывает заболевания нижних дыхательных путей, поражающие людей всех возрастов, однако наиболее серьезные симптомы проявляются у новорожденных, младенцев, пожилых людей и пациентов с ослабленным иммунитетом [2]. По данным глобального исследования общая смертность от HRSV может достигать 94 600—149 400 человек каждый год [3]. Поскольку респираторно-синцитиальная инфекция не оставляет стойкого иммунитета, реинфекция возможна в любом возрасте [4, 5]. В России ежегодный эпидемический подъем заболеваемости вирусной инфекцией наблюдается поздней осенью, зимой и ранней весной [6].
Респираторно-синцитиальный вирус представляет собой одноцепочечный РНК-вирус рода Orthopneumovirus семейства Pneumoviridae [7]. Среди трудностей, связанных с изучением вируса и созданием новых подходов к терапии вызываемых им заболеваний, следует отметить отсутствие единой модели респираторно-синцитиальной инфекции на животных из-за различных фенотипов заболевания, вызываемых вирусом у разных видов [8—13]. Кроме того, многие авторы подчеркивают сложность культивирования HRSV в культурах клеток [14]. Большинство исследований in vitro проводили с использованием постоянных клеточных линий дыхательных путей (HEp-2, A549, BEAS-2B) либо первичных эпителиальных клеток, полученных из дыхательных путей легких человека. Недостатком последних является ограничение в клиническом материале для получения первичных культур клеток. Таким образом, для выделения и изучения HRSV охарактеризован узкий клеточный спектр [15].
В данной работе были проанализированы взаимодействия исследуемого вируса с диплоидной культурой клеток легкого эмбриона человека (ЛЭЧ-3) и перевиваемой клеточной линией карциномы человека (HeLa). Полученные результаты в дальнейшем позволят получить информацию об эффективности репликации HRSV в разных культурах человеческого происхождения и его влиянии на митотический цикл различных типов клеток. Эти данные могут быть полезны для более глубокого понимания патогенеза вирусной инфекции и разработки новых подходов к ее терапии.
Материал и методы
Работа проведена с использованием двух типов клеток, чувствительных к HRSV: диплоидных культур клеток ЛЭЧ-3 и перевиваемых клеток HeLa из коллекции ФНИИВИ «Виром» Роспотребнадзора. Первые выращивали в смеси равных объемов сред Eagle МЕМ (HiMedia, Индия) и Medium 199 (HiMedia, Индия) с добавлением 10% сыворотки Fetal Bovine Serum (HiMedia, Индия) в пластиковых флаконах с площадью 25 см2 (Corning, США). HeLa культивировали с использованием Medium 199 с 10% FBS.
Для выделения HRSV были отобраны носоглоточные мазки от больных с острой респираторной вирусной инфекцией (ОРВИ) с положительным результатом ОТ-ПЦР на его наличие и отрицательным на другие респираторные вирусы («АмплиСенс Influenza virus A/B-FL» и «АмплиСенс ОРВИ-скрин-FL», Россия).
С целью изучения чувствительности клеточных культур к HRSV клинический материал вносили в культуральные плоскодонные пробирки (TFS, США) с монослоем исследуемых клеток и инкубировали при +37 °C в условиях CO2 инкубатора (Binder, Германия). Визуальную оценку признаков цитопатического эффекта (ЦПЭ) вируса проводили каждые 24 ч под инвертированным микроскопом Primovert (Carl Zeiss AG, Германия). При наличии дегенеративных изменений в монослое отбирали супернатант и подтверждали вирусную активность HRSV методом ОТ-ПЦР.
Динамику репликации HRSV в каждой культуре клеток определяли измерением титра вируса в вируссодержащей жидкости (MOI 1) в разные временные точки на 96-луночных культуральных планшетах (SPL Life Sciences, Корея). Результаты учитывали по выявлению характерного ЦПЭ при совместном культивирования при +37 °C с повышенным содержанием CO2 в течение 14 сут. Значение 50% тканевой цитопатической дозы (lg ТЦПД50/см3) рассчитывали по методу Рида и Менча [16].
Митотическую активность клеток определяли на 1000 клеток (‰) при пересчете 6000—8000 клеток, учитывая клетки в поздней про-, мета-, ана- и телофазах. Аберрантные митозы классифицировали по схеме, предложенной И.А. Аловым [17]. Для определения патологических форм митоза считали 300 делящихся клеток, принимая во внимание клетки с фрагментацией ядер, а также ядрами неправильной формы (лопастные, почкующиеся и гигантские) [18].
Статистическая обработка данных выполнена с помощью программного обеспечения Microsoft Office Excel 2019. Достоверность различий средних значений показателя инфекционного титра в клетках ЛЭЧ-3 и HeLa подтверждали с помощью t-критерия Стьюдента. Достоверность различий между значениями митотической активности оценивали параметрическими и непараметрическими критериями (F-критерий Фишера и U-критерий Манна-Уитни) сравнения независимых выборок. Достоверность различий считали статистически значимой при уровне значимости 0,05.
Результаты и обсуждение
Диплоидная культура клеток ЛЭЧ-3, используемая в работе в фазе активной пролиферации, представляла собой фибробластоподобные клетки, обладающие ориентированным ростом, указывающим на наличие контактного торможения. Ядра овальные, вытянутые. Митотическая активность клеток на 3 сутки роста составила 16,8±0,06‰. Количество патологических форм митоза было незначительным и составляло не более 1,7±0,8% от числа делящихся клеток.
Перевиваемая линия клеток HeLa отличалась эпителиоподобной формой клеток (реже — полигональные или вытянутые). Ядра овальные, крупные. Митотический индекс на 3-и сутки роста соответствовал 56,0±1,51 ‰. Количество аномальных форм митоза в этой культуре составляло 25,7±0,89% от числа делящихся клеток.
Для выделения HRSV было проведено 3 слепых пассажа в условиях монослоя исследуемых клеток. Первые морфологические изменения в монослое ЛЭЧ-3 были отмечены на 3-и сутки после заражения и характеризовались утончением веретенообразных клеток. Цитопатические перестройки в линии HeLa наблюдались несколько раньше — на 2-е сутки эксперимента было отмечено набухание и вакуолизация клеток. На 4-е сутки ЦПЭ в обеих клеточных культурах носил специфический для HRSV характер. В монослое зараженных клеток выделялись отдельные симпласты различной формы: для ЛЭЧ-3 чаще веретенообразной (рис. 1), а для HeLa — округлой (рис. 2).
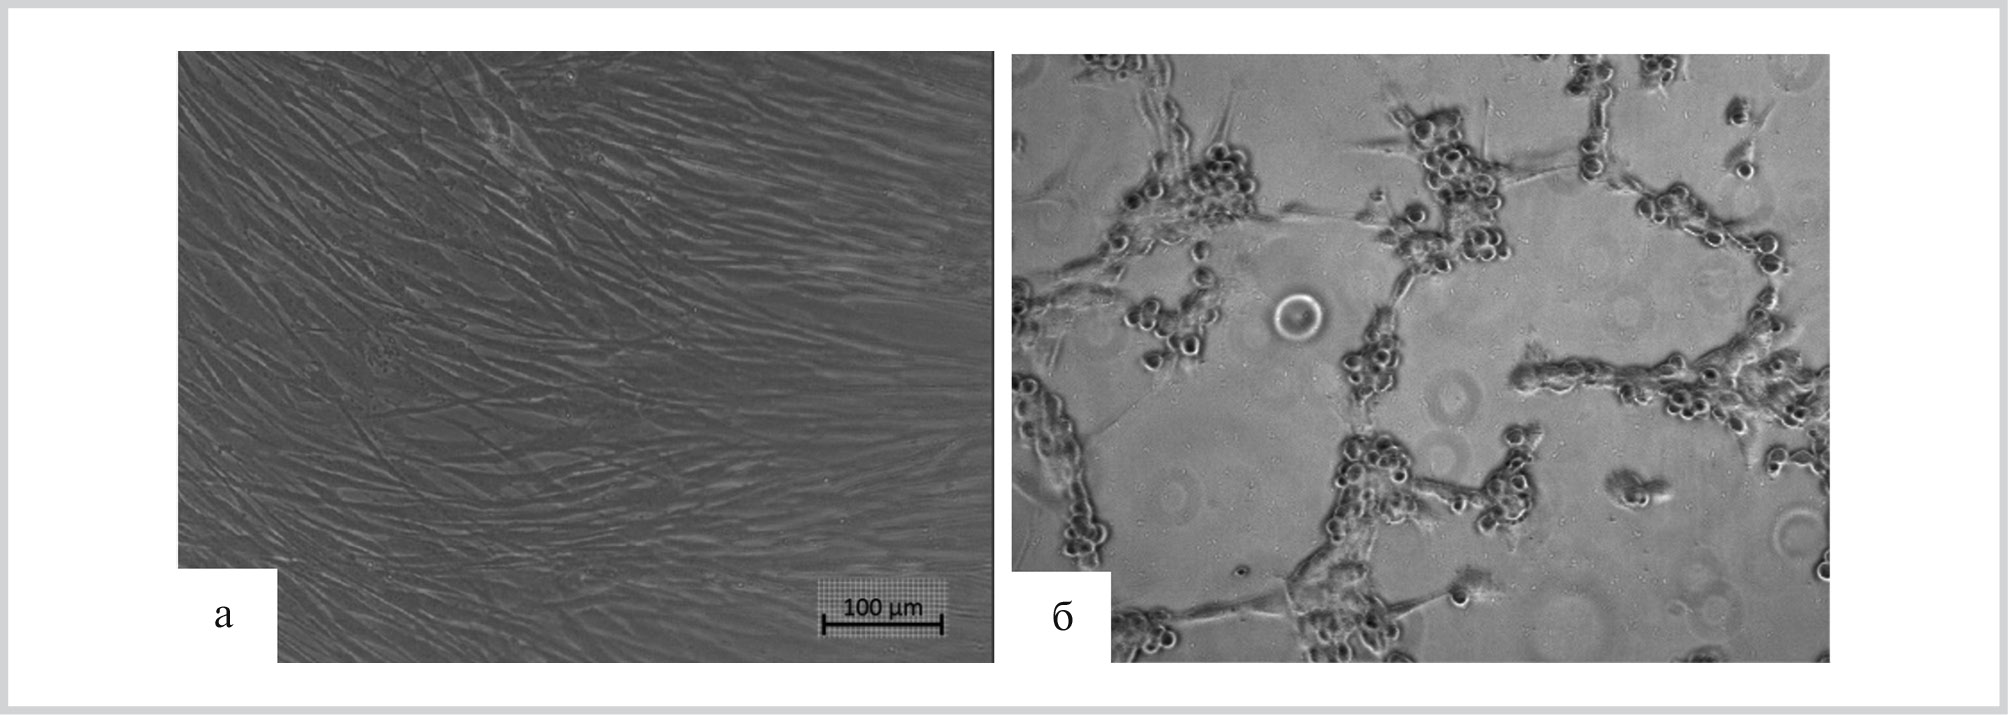
Рис. 1. Цитопатический эффект (ЦПЭ) на культуре клеток ЛЭЧ-3 при увеличении объектив Primo Plan-ACHROMAT 10´/0,25 Ph 1, окуляр WF 10×/20.
а — интактная монослойная культура клеток; в — зараженная культура HRSV на 4-е сутки.
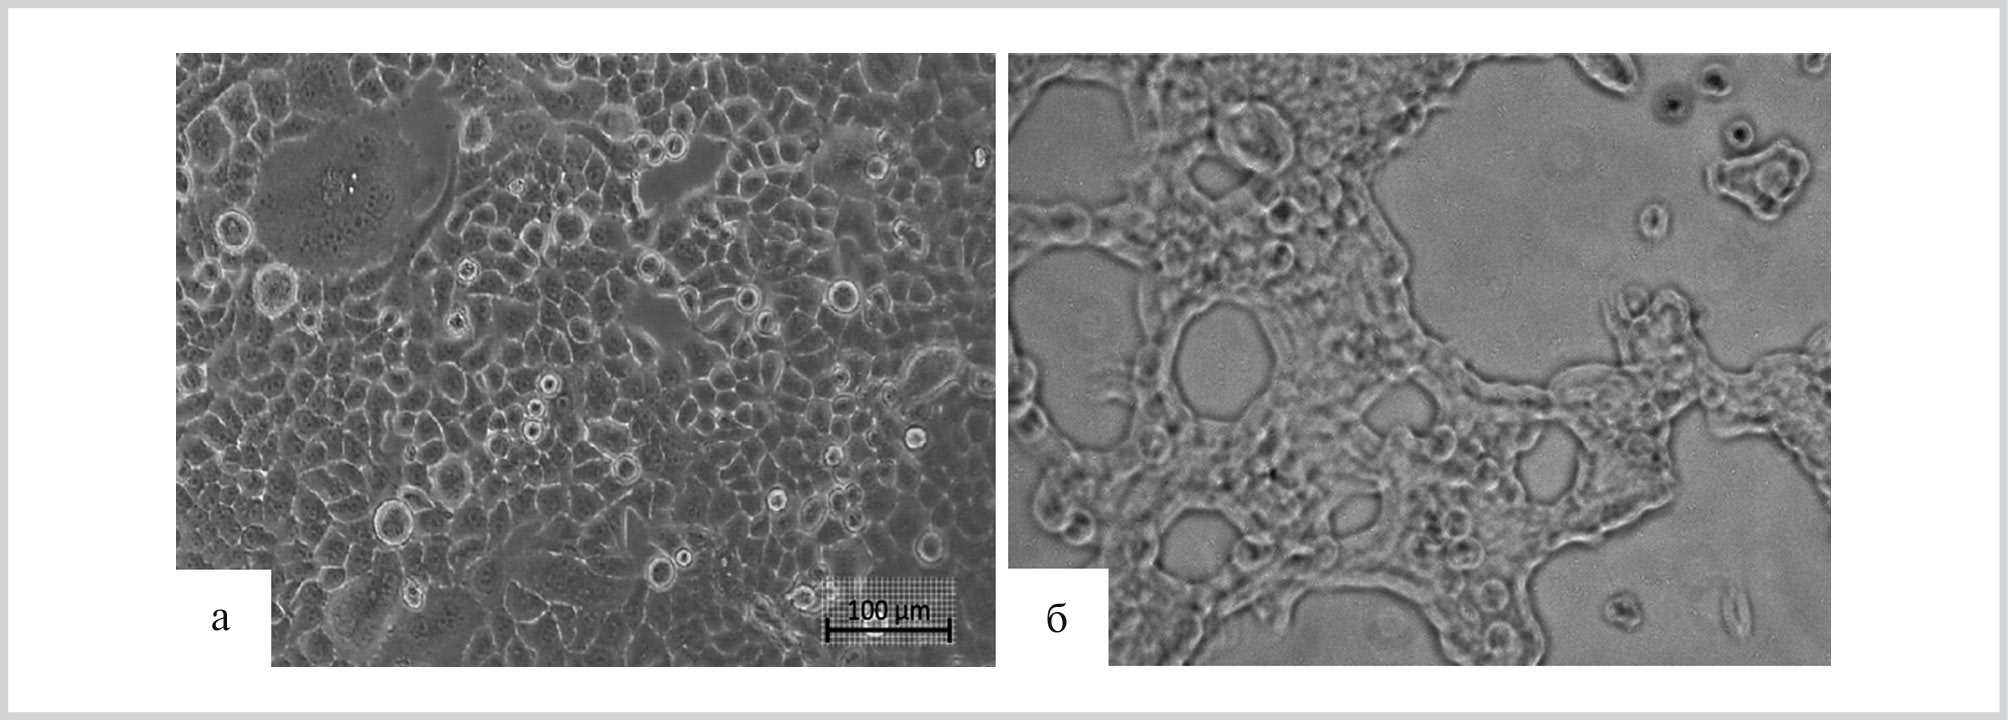
Рис. 2. Индикация репродукции вируса в культуре клеток HeLa по цитопатическому эффекту (ЦПЭ) 3 при увеличении объектив Primo Plan-ACHROMAT 10´/0,25 Ph 1, окуляр WF 10×/20.
а — интактная монослойная культура клеток; в — зараженная культура HRSV на 4-е сутки.
Сравнительное изучение накопления HRSV в клетках ЛЭЧ-3 и HeLa на четвертом пассаже выявило, что в ЛЭЧ-3 инфекционный титр вируса составлял 5,50±0,17, что на 1,5—2,0 выше, чем вирусная нагрузка в HeLa — 3,57±0,04 (рис. 3). Митотическая активность клеток HeLa, заряженных HRSV, была резко угнетена в течение всего срока наблюдения относительно контроля (56,0±1,51) и изменялась в диапазоне от 12,2±1,3 до 34,6±0,9. Коэффициент фаз для незараженной культуры составлял 1,4±0,8, а для инфицированных клеток этот показатель увеличился, достигая 4,5±0,74 в 1-е сутки после заражения.
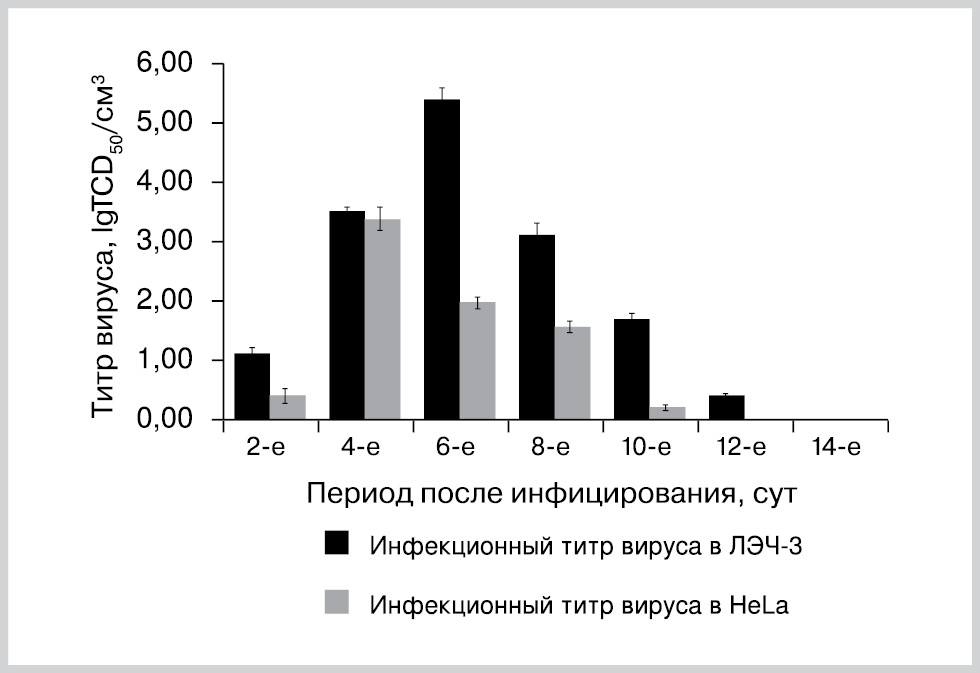
Рис. 3. Сравнительная характеристика репродукции HRSV в клеточных линиях ЛЭЧ-3 и HeLa в течение 14 дней.
Таким образом, клеточная культура ЛЭЧ-3 является более чувствительной к HRSV, чем HeLa. Кроме того, в диплоидных клетках репликация вируса наблюдалась на 2—12-е сутки, а в эпителиальных — на 2—10-е сутки.
Изучение митотического цикла клеток является важным аспектом вирусологических исследований, особенно при изучении влияния вирусов на клетки хозяев и патогенез вирусных инфекций. Митотическая активность клеток ЛЭЧ-3 в 1-е сутки после заражения HRSV увеличивалась по сравнению с контролем (16,8±0,06‰), достигая 24,2±0,2 ко 2-му дню исследования (таблица). По мере развития дегенеративных процессов в культуре под действием вируса митотическая активность клеток снижалась до 8,8±0,04 ‰ на 4-е сутки. Величина коэффициента фаз зараженных клеток ЛЭЧ-3 в 2 раза превышала уровень незараженной культуры, что свидетельствует о превалировании числа профаз и метафаз над количеством ана- и телофаз.
Характеристика показателей митотического режима клеток ЛЭЧ-3 и HeLa, зараженных HRSV
Клеточная культура | Время после заражения, сут | Митотическая активность, ‰ | Коэффициент соотношения фаз митоза | Патологические митозы, % |
ЛЭЧ-3 | 1 | 19,6±0,4* | 2,1±0,12 | 3,0±0,55 |
2 | 24,2±0,2* | 2,8±0,3 | 3,5±0,54 | |
3 | 12,4±0,12* | 1,8±0,04 | 4,2±0,27 | |
4 | 8,8±0,04** | 1,7±0,12 | 6,4±0,3 | |
контроль | 16,8±0,06 | 1,4±0,02 | 1,7±0,8 | |
HeLa | 1 | 12,2±1,3** | 4,5±0,74 | 53,0±1,1 |
2 | 16,0±1,21** | 2,6±1,41 | 68,2±1,4 | |
3 | 22,2±0,87* | 3,5±1,5 | 78,4±2,2 | |
4 | 34,6±0,9* | 3,2±1,34 | 72,1±1,4 | |
контроль | 56,0±1,51 | 1,4±0,8 | 25,7±0,89 |
Примечание. * — достоверное различие по критерию Фишера (Fтеор<Fкрит, p≤0,05); ** — достоверные различия по критерию Манна—Уитни (Uтеор≤Uкрит, p≤0,05).
Как в клетках ЛЭЧ-3, так и HeLa уже на следующий день после заражения наблюдалось увеличение числа патологических митозов (3,0±0,55 и 53,0±1,1 соответственно). В обеих клеточных культурах при заряжении HRSV основная доля аномалий митозов была представлена патологическими метафазами. Результаты качественной характеристики патологии метафаз показали, что основную часть патологических митозов в культурах составляли метофазы с отставанием хромосом, колхициноподобные и трехполюсные. Кроме того, для клеток ЛЭЧ-3 характерной была патология типа пиктнотической телофазы.
Оценивая ответную реакцию клеток изучаемых культур на заражение HRSV, можно отметить общую закономерность, характерную для клеток фибробластопободного и эпителиоидного типов. Однако изменения митотической активности в сравниваемых культурах были различны — стимуляция в фибробластоподобных клетках и угнетение в эпителиоподобной культуре HeLa.
Изучение патогенеза и разработка лекарственной терапии для заболеваний, вызываемых HRSV, являются важными задачами в медицинской науке. Применение in vitro моделей позволяет более детально изучить молекулярные и клеточные механизмы, связанные с патогенезом HRSV, без необходимости проведения экспериментов на живых организмах.
Создание экспериментальной модели in vitro может способствовать изучению различных аспектов вирусной инфекции, включая основные механизмы взаимодействия вируса с клетками дыхательной системы, влияние на иммунную систему и эффективность потенциальных противовирусных препаратов. Такая модель может быть полезной для определения молекулярных мишеней, связанных с репликацией вируса, и для изучения механизмов проникновения вируса в клетки.
Анализ чувствительности клеток к HRSV имеет важное значение при выборе клеточной модели для изучения патогенеза и лекарственной терапии данного вируса. Результаты показывают, что клетки ЛЭЧ-3 проявляют более явные морфологические изменения и имеют более высокие титр вируса (5,50±0,17) в сравнении с клетками HeLa (3,57±0,04). Это свидетельствует о более выраженной реакции клеток ЛЭЧ-3 на инфекцию HRSV. Также важными показателями для выбора клеточной модели ЛЭЧ-3 являются минимальное количество патологических митозов и длительная сохраняемость клеточного пласта в контрольной и экспериментальных группах (до 12—14 сут, относительно HeLa, у которых монослой сохранялся до 8—10 дней).
Заключение
Рекомендуется использовать клеточную линию ЛЭЧ-3 для работы с HRSV, несмотря на чувствительность к данному вирусу, указанную в паспорте обеих культур клеток. Однако следует отметить, что выбор клеточной модели может зависеть от конкретных целей и задач исследования, а также от доступности и специфических требований протоколов проведения эксперимента.
Финансирование. Работа выполнена в рамках государственного задания ФБУН ФНИИВИ «Виром» Роспотребнадзора №14-21 на проведение прикладных научных исследований (номер государственного учета НИР 121041500044-2).
Конфликт интересов. Авторы заявляют об отсутствии конфликта интересов, требующего раскрытия в данной статье.
- Бевза С.Л., Харламова Ф.С. Респираторно-синцитиальная вирусная инфекция: современный взгляд на проблему. Детские инфекции. 2008;(1):43-51.
- Galvez N, Soto J, Kalergis A. New Insights Contributing to the Development of Effective Vaccines and Therapies to Reduce the Pathology Caused by hRSV. International Journal of Molecular Sciences. 2017;18(8):1753. https://doi.org/10.3390/ijms18081753
- Shi T, McAllister DA, O’Brien KL, Simoes EAF, Madhi SA, Gessner BD et al. Global, regional, and national disease burden estimates of acute lower respiratory infections due to respiratory syncytial virus in young children in 2015: a systematic review and modelling study. The Lancet. 2017;390(10098):946-958. https://doi.org/10.1016/s0140-6736(17)30938-8
- Taylor G. Animal models of respiratory syncytial virus infection. Vaccine. 2017;35(3):469-480. https://doi.org/10.1016/j.vaccine.2016.11.054
- Martin-Vicente M, Gonzalez-Riaño C, Barbas C, Jimenez-Sousa MA, Brochado-Kith O, Resino S, et al. Metabolic changes during respiratory syncytial virus infection of epithelial cells. PloS One. 2020;15(3):e0230844. https://doi.org/10.1371/journal.pone.0230844
- Овсянников Д.Ю., Кршеминская И.В. Иммунопрофилактика респираторно-синцитиальной вирусной инфекции: почему это важно с эпидемиологической и клинической точки зрения. Неонатология: Новости. Мнения. Обучение. 2017;2(16):34-49. https://doi.org/10.24411/2308-2402-2017-00026
- Amarasinghe GK, Ayllon MA, Bao Y, Basler CF, Bavari S, Blasdell KR et al. Taxonomy of the order Mononegavirales: update 2019. Archives of Virology. 2019;164(7):1967-1980. https://doi.org/10.1007/s00705-019-04247-4
- Shahriari S, Wei K, Ghildyal R. Respiratory Syncytial Virus Matrix (M) Protein Interacts with Actin In Vitro and in Cell Culture. Viruses. 2018;10(10):535. https://doi.org/10.3390/v10100535
- Schwab LSU, Farrukee R, Eleouët JF, Rameix-Welti MA, Londrigan SL, Brooks AG, et al. Retinoic Acid — Inducible Gene I Activation Inhibits Human Respiratory Syncytial Virus Replication in Mammalian Cells and in Mouse and Ferret Models of Infection. The Journal of Infectious Diseases. 2022;226(12):2079-2088. https://doi.org/10.1093/infdis/jiac295
- Heylen E, Neyts J., Jochmans D. Drug candidates and model systems in respiratory syncytial virus antiviral drug discovery. Biochemical Pharmacology. 2017;127:1-12. https://doi.org/10.1016/j.bcp.2016.09.014
- Russell CD, Unger SA, Walton M, Schwarze J. The Human Immune Response to Respiratory Syncytial Virus Infection. Clin. Microbiol. Rev. 2017;30(2):481-502. https://doi.org/10.1128/CMR.00090-16
- Moore ML, Peebles RS. Respiratory syncytial virus disease mechanisms implicated by human, animal model, and in vitro data facilitate vaccine strategies and new therapeutics. Pharmacology & Therapeutics. 2006;112(2):405-424. https://doi.org/10.1016/j.pharmthera.2006.04.008
- Villenave R, Thavagnanam S, Sarlang S, Parker J, Douglas I, Skibinski G et al. In vitro modeling of respiratory syncytial virus infection of pediatric bronchial epithelium, the primary target of infection in vivo. Proceedings of the National Academy of Sciences. 2012;109(1)3:5040-5045. https://doi.org/10.1073/pnas.1110203109
- Prokopyeva EA, Kurskaya OG, Solomatina MV, Sobolev IA, Saroyan TA, Dubovitskiy NA et al. Virological and genetic characteristics of human respiratory syncytial viruses isolated in Russia, 2017-2018. Journal of Infection in Developing Countries. 2023;17(02):251-259. https://doi.org/10.3855/jidc.17462
- Bohmwald K, Galvez NMS, Canedo-Marroquin G, Pizarro-Ortega MS, Andrade-Parra C, Gómez-Santander F et al. Contribution of Cytokines to Tissue Damage During Human Respiratory Syncytial Virus Infection. Frontiers in Immunology. 2019;10:452. https://doi.org/10.3389/fimmu.2019.00452
- Reed LJ, Muench H. A simple method of estimating fifty per cent endpoints. American Journal of Epidemiology. 1938;27(3):493-497. https://doi.org/10.1093/oxfordjournals.aje.a118408
- Алов И.А. Патология митоза. Вестник Академии наук СССР. 1965;(11):58-66.
- Блюмкин В.Н., Жданов В.М. Влияние вирусов на хромосомный аппарат и деление клеток. М.: Медицина; 1973.


Рекомендуем статьи по данной теме:
Стратегия ведения пациенток с функциональной стресс-ассоциированной ановуляцией.Российский вестник акушера-гинеколога. 2026;26(4):86-92
Психогенные расстройства и сексуальные дисфункции у женщин с бесплодием.Журнал неврологии и психиатрии им. С.С. Корсакова. 2026;126(3):74-80
Мужское бесплодие в Центральной Азии: первое сообщение из региона.Проблемы репродукции. 2025;31(3):92-98
Оксидативный стресс и антиоксидантная терапия в лечении преждевременной недостаточности яичников и улучшении качества жизни.Проблемы репродукции. 2025;31(1):21-34
Репродуктивное здоровье женщин с гепатитом C (обзор литературы и собственные данные).Проблемы репродукции. 2025;31(1):12-20
Клинический случай успешной беременности у пациентки с АКТГ-эктопированным синдромом после радикального хирургического лечения.Проблемы репродукции. 2024;30(6):118-123
Оксидативный стресс, ферроптоз, соматические мутации, антиоксидантная терапия и эндометриоз: новый взгляд на проблему.Проблемы репродукции. 2024;30(6):32-44