Состав кишечной микробиоты у пациентов с впервые выявленным сахарным диабетом 2 типа, ранее не получавших сахароснижающую терапию
Журнал: Доказательная гастроэнтерология. 2026;15(3):23-43.
DOI: 10.17116/dokgastro20261503123
Прочитано: 77 раз
Резюме
Изменения кишечной микробиоты (КМ) рассматриваются как один из ключевых факторов патогенеза сахарного диабета 2 типа (СД2), однако ее таксономическая структура, а также особенности энтеротипов (ЭТ) и микробиотических кооперативов (МК) остаются недостаточно изученными.
ЦЕЛЬ ИССЛЕДОВАНИЯ
Изучить состав кишечной микробиоты у пациентов с впервые выявленным СД2, ранее не получавших сахароснижающую терапию.
МАТЕРИАЛ И МЕТОДЫ
Проведено обсервационное исследование с анализом КМ методом ампликонного секвенирования гена 16S рРНК. Энтеротипы определяли с использованием кластерного анализа (Dirichlet mixture), МК — алгоритма SPIEC-EASI.
РЕЗУЛЬТАТЫ
На уровне типа, класса и порядка не выявлены значимые различия с популяцией контроля. На уровне семейства отмечено преобладание Lachnospiraceae над Bacteroidaceae. На уровне рода доминировали Bacteroides, Blautia и Alistipes; на видовом уровне — высокая представленность Bacteroides vulgatus и Prevotella copri на фоне значительного количества неидентифицированных таксонов. Выделены три ЭТ: ЭТ-1 включал бактерии, отрицательно ассоциированные с риском развития СД2 и ожирения (Faecalibacterium, Christensenella), а также бактерии, положительно связанные с риском СД2 (Bacteroides); ЭТ-2 характеризовался преобладанием Blautia и Bacteroides, ассоциированных с СД2 и атеросклерозом; для ЭТ-3 было характерно доминирование Prevotella и Faecalibacterium, что ассоциируется с более низким риском развития и прогрессирования СД2. Выявлены четыре доминирующих МК: от неблагоприятного (МК-1, ассоциированного с СД2, ожирением и атеросклерозом) до протективного (МК-4, представленного бутират-продуцирующими бактериями).
ЗАКЛЮЧЕНИЕ
Кишечная микробиота при впервые выявленном СД2 характеризуется специфическими таксономическими особенностями и вариабельностью ЭТ и МК, что может быть использовано для разработки прогностических моделей.
Ключевые слова
- сахарный диабет 2 типа
- кишечная микробиота
- энтеротипы
- микробиотические кооперативы
- 16S рРНК
Дата поступления: 03.09.2024
Дата принятия в печать: 03.12.2024
Дата публикации: 06.10.2026
Введение
Сахарный диабет 2 типа (СД2) — это гетерогенное заболевание, развитие которого ассоциировано в первую очередь с инсулинорезистентностью (ИР) или относительной инсулиновой недостаточностью, возникающей на фоне дисфункции β-клеток поджелудочной железы (ПЖ) [1]. К числу значимых патогенетических факторов также относятся нарушение инкретинового эффекта, дисфункция α-клеток ПЖ, усиление реабсорбции глюкозы в почках, повышение ее абсорбции в желудочно-кишечном тракте (ЖКТ), а также хроническое воспаление [2].
В последние годы особое внимание уделяется кишечной микробиоте (КМ) как одному из потенциальных патогенетических факторов развития СД2 [2, 3]. Установлено, что дисбиоз КМ сопровождается нарушением секреции инкретиновых гормонов, инсулина и глюкагона, повышением проницаемости кишечного барьера для эндотоксинов и развитием хронического системного воспаления. Кроме того, избыточная продукция короткоцепочечных жирных кислот (КЦЖК) кишечными микроорганизмами может приводить к их накоплению в метаболически активных тканях, что в сочетании с воспалительными изменениями способствует формированию ИР [3]. Таким образом, КМ может оказывать влияние на ключевые звенья патогенеза СД2.
Однако результаты исследований, опубликованные в течение последнего десятилетия, не позволяют однозначно идентифицировать специфические кишечные маркеры СД2 на различных уровнях таксономии (тип, класс, порядок, семейство, род, вид). В частности, в ряде работ показано, что для пациентов с СД2 характерно увеличение доли типа Firmicutes на фоне снижения доли Bacteroidetes [4—6], тогда как в других исследованиях, напротив, отмечается повышение представленности Bacteroidetes [7, 8]. Аналогичные противоречия выявлены и на уровне типа: по данным одних исследований, относительная численность Verrucomicrobia у пациентов с СД2 увеличивается, тогда как в других — снижается [9, 10]. Несмотря на это, в литературе описан широкий спектр бактериальных родов, ассоциированных с риском развития СД2. К ним относятся Blautia, Ruminococcus, Fusobacterium, Coprococcus, Sporobacter, Abiotropia, Peptostreptococcus, Parasutterella, Collinsella, Bacteroides, Alistipes, Dialister, Bilophila, Sutterella, Escherichia-Shigella и Lactobacillus, относительная представленность которых у пациентов с СД2 повышена по сравнению со здоровыми лицами. В то же время снижение численности таких родов, как Faecalibacterium, Roseburia, Prevotella, Akkermansia и Bifidobacterium, ассоциируется с более низким риском развития заболевания [8, 11—14]. Следует отметить, что данные о роли отдельных бактериальных родов остаются противоречивыми. Так, по данным R. Inoue и соавт., Blautia, традиционно рассматриваемый как неблагоприятный таксон, имеет обратную корреляцию с уровнем гликированного гемоглобина (HbA1c) [15]. В исследовании PREDIMED-Plus показано, что бутират-продуцирующий род Faecalibacterium положительно ассоциирован с индексом ИР (HOMA-IR) у пациентов с ожирением без СД2, что указывает на его потенциальную роль в развитии ИР [16]. С одной стороны, имеющиеся данные, вероятно, объясняются различиями в возрасте, этносе, особенностями питания участников исследования. С другой — КМ представляют более 100 трлн микроорганизмов, более 1500 родов и 30 000 видов, которые не просто сосуществуют в определенных условиях среды, а взаимодействуют друг с другом: обмениваются генетической информацией, ферментами и питательными веществами, мимикрируют эффекты друг друга, осуществляют хищничество по отношению друг к другу, секретируя ряд бактерицидных соединений, постоянно находясь в условиях жесткой конкуренции за пищу и благоприятные условия жизнедеятельности [17, 18]. Более того, кишечные бактерии способны не только к конкуренции и сосуществованию, но и к позитивному взаимодействию, образуя микробиотические сообщества. Такое взаимодействие позволяет микроорганизмам выжить в условиях конкуренции, а также обеспечить толерантность к внешним стрессорам: антибиотикам, воспалению, экзотоксинам [18]. Таким образом, изучение влияний отдельных кишечных представителей на риск развития СД2 не совсем корректно и целесообразно, так как, по всей видимости, отдельные представители КМ в разных условиях (видовое разнообразие, воспаление и др.) способны изменять свои свойства и по-разному влиять на риск развития тех или иных патологических состояний. Следовательно, более оправданно идентифицировать сообщества кишечных бактерий, задающих «вектор функциональной активности» для всех других представителей КМ [17, 18]. Именно поэтому в последнее время активно предпринимаются попытки упрощения и систематизации широкого многообразия кишечных бактерий в группы, связанные общими процессами жизнедеятельности и едиными биологическими эффектами. Одна из таких классификаций основана на выявлении энтеротипов (ЭТ) КМ.
Энтеротип — это устойчивый вариант микробного состава кишечника на уровне рода, определяющийся на основании кластерного анализа и характеризующийся схожим бактериальным составом, отражающим функциональные возможности КМ. В популяции здоровых лиц описаны три основных ЭТ, определяемых доминирующими родами: ЭТ Bacteroides, ЭТ Prevotella и ЭТ Ruminococcus [19]. В настоящее время данные о распределении ЭТ у пациентов с СД2 ограничены. Так, в исследовании J. Wang и соавт. у данной категории пациентов идентифицированы два ЭТ — ЭТ Bacteroides и ЭТ Prevotella [6]. При этом ЭТ Bacteroides рассматривался как независимый фактор риска развития СД2, преимущественно за счет снижения чувствительности к инсулину, а не за счет влияния на функцию β-клеток поджелудочной железы [6].
Еще одна попытка классификации КМ основана на сетевом анализе совместной встречаемости бактерий, выполняющих единую функцию и взаимодействующих друг с другом на определенном таксономическом уровне (род, вид) [20, 21]. В настоящее время в литературе используются два основных термина, обозначающих устойчивое сообщество кишечных бактерий со схожим функциональным потенциалом: «кооператив» и «сеть взаимодействия бактерий» [22—24]. Ввиду отсутствия общепринятой терминологии в нашей работе мы предпочли отказаться от ранее использованных определений и ввели понятие «микробиотический кооператив» (МК), который, как нам кажется, более точно отражает взаимодействия бактерий внутри КМ друг с другом с осуществлением общих функций и достижением единых целей.
В настоящее время имеются ограниченные данные о количестве, составе и функциях МК у здоровых людей. Тем не менее в исследовании O. Volokh и соавт. у здоровой популяции идентифицировано три МК: МК-1 представлен бутират-продуцирующими бактериями; МК-2 — представителями семейств Bacteroidaceae и Porphyromonadaceae; МК-3 — бактериями, обладающими противовоспалительным потенциалом и предотвращающими развитие ожирения [22]. Количество исследований, изучающих МК у пациентов с СД2, резко ограничено. Так, в работе Q. Li и соавт. выявлены положительные ассоциации бактерий Butyricimonas, влияющих на развитие СД2, с семействами Rikenellaceae и Christensenellaceae, отрицательные — между Dorea и Sutterella, а также Dialister и Phascolarctobacterium [24]. Более того, в исследовании T. Das и соавт. выявлено 14 доминирующих родов, для которых характерны положительные или отрицательные взаимодействия с другими бактериями. При этом 6 из них (Gardnerella, Atopobium, Fusobacterium, Gemella, Halomonas и Vagococcus) отличались выраженным провоспалительным потенциалом, что косвенно подтверждает связь между хроническим системным воспалением и риском развития СД2 [23]. Однако следует отметить, что в проведенных исследованиях указывались только доминирующие роды, участвующие в образовании ассоциативных связей с другими бактериями. Качественный и количественный состав МК у пациентов с СД2 до настоящего время подробно не описан. Следовательно, ранее показано только наличие взаимодействий между кишечными бактериями у пациентов с СД2. Однако более глубокое описание всех групп бактерий, взаимодействующих друг с другом внутри КМ, а также описание биологических эффектов ключевых бактерий внутри каждого выявленного МК позволило бы идентифицировать вектор функциональной активности всей КМ человека, что было бы чрезвычайно полезно для последующей разработки предсказательной модели риска развития СД2, его осложнений и осуществления персонализированного лечения.
Таким образом, описание таксономического состава КМ на примере российской когорты пациентов с впервые выявленным СД2, а также подробное описание бактериального состава ЭТ и МК является перспективным направлением, так как расширение научного представления о составе КМ у пациентов с впервые выявленным СД2 в будущем может быть использовано для разработки предсказательной модели развития и течения данного заболевания, а также риска возникновения осложнений.
Цель исследования — изучить состав КМ у пациентов с впервые выявленным СД2, ранее не получавших сахароснижающую терапию (ССТ).
Место и время проведения исследования
Все пациенты, включенные в исследование, госпитализированы в эндокринологическое отделение ГБУЗ города Москвы «Городская клиническая больница имени В.П. Демихова ДЗМ города Москвы» в период с 10.2019 по 02.2021.
Изучаемые популяции
Проведено обсервационное одноцентровое проспективное исследование 100 пациентов с впервые выявленным СД2, которые ранее не получали ССТ.
Критерии включения: наличие СД2; отсутствие кетоацидоза; возраст старше 18 и моложе 85 лет; отсутствие приема ССТ в анамнезе; отсутствие приема антибиотиков, иммуносупрессантов, ингибиторов протонной помпы в течение последних 3 мес, пробиотиков, пребиотиков и синбиотиков в течение последнего месяца, нестероидных противовоспалительных средств в течение последних 2 нед.
Критерии исключения: наличие СД1; острые заболевания ЖКТ или обострение хронических заболеваний ЖКТ; психические заболевания; беременность и лактация; онкологические заболевания; прием глюкокортикостероидов; гемотрансфузия в анамнезе; трансплантация органов и костного мозга в анамнезе.
Дизайн исследования представлен на рис. 1.
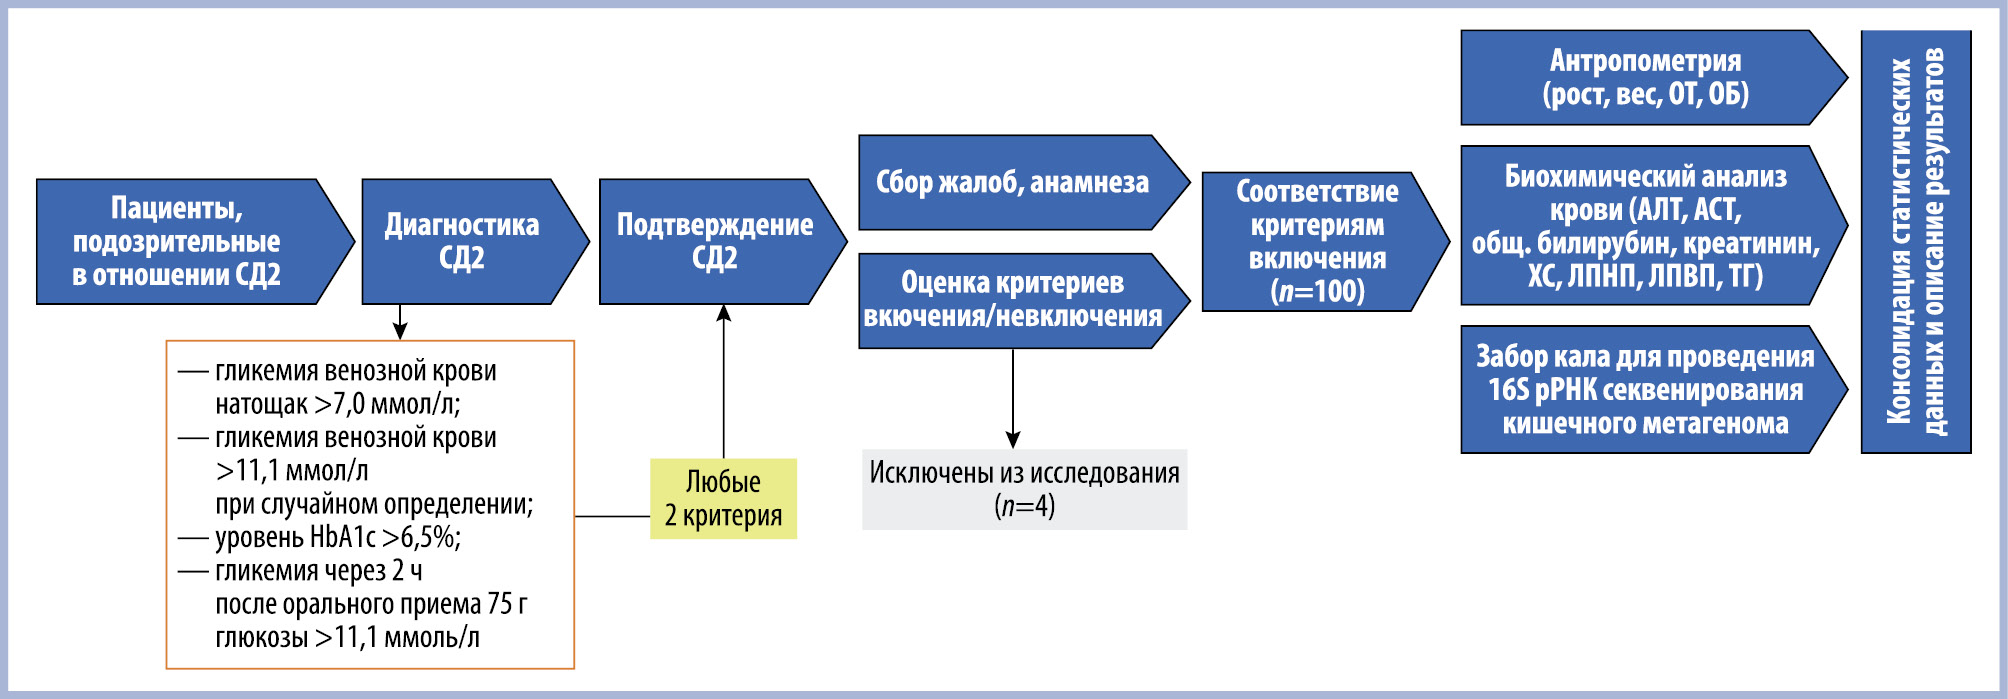
Рис. 1. Дизайн исследования.
HbA1c — гликированный гемоглобин; ОТ — окружность талии, ОБ — окружность бедер; ХС — общий холестерин; ЛПНП — липопротеины низкой плотности; ЛПВП — липопротеины высокой плотности; ТГ — триглицериды.
Fig. 1.Study design.
HbA1c — glycated hemoglobin; WC — waist circumference; HC — hip circumference; TC — total cholesterol; LDL — low-density lipoprotein; HDL — high-density lipoprotein; TG — triglycerides.
Методы исследования
Проведен сбор анамнеза всех пациентов. Исследованы антропометрические показатели: рост, масса тела, индекс массы тела (ИМТ), окружность талии (ОТ) и окружность бедер (ОБ). Определены показатели углеводного обмена (глюкоза плазмы крови натощак (ГПН), HbA1c) и липидного обмена (общий холестерин (ОХ), липопротеины низкой плотности (ЛПНП), липопротеины высокой плотности (ЛПВП), триглицериды). У всех участников исследования собраны образцы кала в стерильные контейнеры с транспортной средой Norgen.
Выделение ДНК и секвенирование кишечного микробиома. Выделение ДНК из образцов кала проведено с использованием набора Qiagen Power Fecal PRO («Qiagen GmbH», Германия) в соответствии с инструкцией производителя. Амплификацию вариабельного участка V4 гена 16S рРНК проводили с использованием системы праймеров: модификация 515 F (5′-GTGBCAGCMGCCGCGGTAA-3′) и Pro-mod-805 R (5′-GACTACNVGGGTMTCTAATCC-3′). Второй раунд амплификации проводили с использованием стандартных индексов Illumina с адаптерами. Оба раунда полимеразной цепной реакции (ПЦР) выполнены с использованием буфера ПЦР (ЗАО «Евроген», Россия) и амплификатора CFX-96 («Bio-Rad Laboratories, Inc.», США). Очистку продуктов ПЦР проводили с помощью набора для выделения ДНК реакционных смесей Cleanup Mini (ЗАО «Евроген», Россия). Концентрацию ДНК определяли с помощью флюориметра Qubit («Invitrogen Corporation», США) с использованием набора Quant-iT dsDNA High-Sensitivity Assay Kit («Thermo Fisher Scientific Inc.», США). Очищенные ампликоны смешивали эквимолярно в соответствии с полученными концентрациями. Секвенирование пулированной библиотеки осуществляли с использованием набора MiSeq Reagent Kit v2 (500 циклов) на платформе MiSeq («Illumina, Inc.», США) согласно рекомендациям производителя. После обрезания по баллу качества объединение парных ДНК-прочтений (ридов) проводили с помощью пакета SeqPrep (ООО «ПАРСЕК ЛАБ», Россия); итоговая длина ридов составила 252 пн. Глубина секвенирования для каждого образца составила не менее 10 000 ридов.
Предподготовка и первичный анализ данных. Анализ данных секвенирования микробиома был проведен с помощью платформы Кномикс-Биота (https://biota.knomics.ru/) [25]. Риды предобработаны с использованием программного пакета QIIME2 [25]. Таксономия определена с помощью наивного байесовского классификатора QIIME2, обученного на базе SILVA v138 (https://www.arb-silva.de/documentation/release-138/). База подготовлена с помощью RESCRIPt (https://github.com/bokulich-lab/RESCRIPt).
Альфа-разнообразие оценено после пятикратного прореживания полученных таблиц представленности до 6000 ридов на образец и усреднения результатов. Расстояние между образцами (бета-разнообразие) оценено на уровне бактериальных родов с использованием меры расстояния Брея—Кертиса.
Энтеротипы исследованы с помощью кластерного анализа с использованием метода полиномиальных смесей Дирихле по подобию I. Holmes и соавт. [26]. Анализ совместной встречаемости таксонов в образцах (корреляционный анализ их относительных представленностей) проведен уровне родов с помощью алгоритма SPIEC-EASI [27]. Определены МК как связные компоненты графа положительных корреляций.
Статистический анализ
Статистический анализ данных КМ проведен с помощью программ Microsoft Office Excel 2013, Statistica 10 v.10.0.1011.0 («StatSoft, Inc.», США). Проверка нормальности распределения признаков выполнена по критерию Колмогорова—Смирнова (n>50) или по критерию Шапиро—Уилка (n<50). Для описания признаков с нормальным распределением использованы среднее значение (M), стандартная ошибка среднего значения (m) с указанием 95% доверительного интервала (95% ДИ). При описании признаков с ненормальным распределением использована медиана (Me) с указанием межквартильного диапазона [25-й и 75-й процентили].
Сравнение двух групп по количественному признаку для несвязанных совокупностей и определение уровня значимости p для данных с нормальным распределением выполнено с помощью t-критерия Стьюдента, для совокупностей с ненормальным распределением — с помощью U-критерия Манна—Уитни.
При сравнении количественных признаков для трех и более групп с нормальным распределением использован однофакторный дисперсионный анализ (ANOVA), в результате которого находилось значение F-критерия Фишера. По результатам анализа трех групп для оценки различий показателей при сравнении групп попарно использованы уточняющие критерии Тьюки и Шеффе. В случае если, по крайней мере, в одной группе рассматриваемых показателей распределение отличалось от нормального, использовали непараметрический критерий Краскела—Уоллиса.
Для выявления взаимосвязи между двумя количественными признаками с нормальным распределением использован коэффициент корреляции rxy Пирсона, с ненормальным распределением — коэффициент ранговой корреляции rxy Спирмена. Все различия расценивались как статистически значимые при p<0,05.
Этическая экспертиза
Протокол исследования одобрен локальным этическим комитетом ФГАОУ ВО «РНИМУ им. Н.И. Пирогова» Минздрава России (Протокол №206 от 22.03.2021).
Результаты
В исследование включено 100 пациентов с впервые выявленным СД2, которые ранее не получали ССТ. Все пациенты проживали в Москве не менее 10 лет.
Общая характеристика участников исследования
Выборка пациентов, включенных в исследование, являлась гомогенной: отмечалось одинаковое распределение пациентов по полу (56% — мужчины, 44% — женщины), не определен выраженный разброс данных по возрасту. Так, среднее значение возраста пациентов составляло 53,97±1,21 года (95% ДИ 51,57—56,37). Полученные результаты являются крайне важными для изучения КМ, так как состав КМ зависит от региона проживания, пола и возраста человека [28].
Участники исследования характеризовались наличием ожирения (среднее значение ИМТ — 31,98±0,62 кг/м²; 95% ДИ 30,75—33,20), выраженными нарушениями углеводного обмена (медиана HbA1c — 10,8 [8,25; 12,15]; а ГПН — 10,35 ммоль/л [7,73; 13,27]) и липидного обмена (ОХ — 6,2 ммоль/л [5,3; 7,1]; среднее значение ЛПНП — 4,2±0,11 ммоль/л; 95% ДИ 3,99—4,41). Важно, что отмечена высокая доля пациентов с установленными атеросклеротическими сердечно-сосудистыми заболеваниями (АССЗ) и хронической болезнью почек (ХБП): 15 и 4,08% соответственно.
Таким образом, пациенты с впервые выявленным СД2 характеризовались средним возрастом дебюта заболевания, наличием выраженных глюкозотоксичности и липотоксичности, а также высоким риском развития осложнений данного заболевания. Более того, у некоторых пациентов на момент установления диагноза уже были АССЗ и ХБП. Более подробно клинико-лабораторная характеристика пациентов, включенных в исследование, представлена в табл. 1.
Таблица 1. Клинико-лабораторная характеристика пациентов (n=100)
Table 1.Clinical and laboratory characteristics of the patients (n=100)
Параметр | Пациенты (n=100) |
Мужчины, n (%) | 56 (56) |
Женщины, n (%) | 44 (44) |
Возраст, годы | 53,97±1,21 (95% ДИ 51,57—56,37) |
Рост, см | 169,58±0,94 (95% ДИ 167,72—171,44) |
Вес, кг | 92,10±2,04 (95% ДИ 88,06—96,14) |
ОТ, см | 107,98±1,29 (95% ДИ 105,42—110,54) |
ОБ, см | 109,65±1,07 (95% ДИ 107,53—111,77) |
ИМТ, кг/м2 | 31,98±0,62 (95% ДИ 30,75—33,20) |
ГПН, ммоль/л | 10,35 [7,73; 13,27] |
HbA1c, % | 10,80 [8,25; 12,15] |
Общий холестерин, ммоль/л | 6,20 [5,30; 7,10] |
ЛПНП, ммоль/л | 4,20±0,11 (95% ДИ 3,99—4,41) |
Триглицериды, ммоль/л | 2 [1,45; 3,28] |
ЛПВП, ммоль/л | 1,06±0,05 (95% ДИ 0,95—1,16) |
Креатинин, мкмоль/л | 84,31±1,79 (95% ДИ 80,75—87,87) |
СКФ (CKD-EPI), мл/мин/1,73м2 | 113,66 [102,73; 128,83] |
Коморбидность | |
избыточная масса тела, n (%) | 28 (28) |
ожирение, n (%) | 62 (62) |
дислипидемия, n (%) | 87 (87) |
АССЗ, n (%) | 15 (15) |
ХБП (n=98), n (%) | 4 (4,08) |
Примечание. Данные представлены как M±SD (95% ДИ) или Me [Q1; Q3]. ОТ — окружность талии; ОБ — окружность бедер; ИМТ — индекс массы тела; HbA1c — гликированный гемоглобин; ЛПНП — липопротеины низкой плотности; ЛПВП — липопротеины высокой плотности; СКФ — скорость клубочковой фильтрации; АССЗ — атеросклеротические сердечно-сосудистые заболевания; ХБП — хроническая болезнь почек.
Note. Data are presented as M ± SD (95% CI) or Me [Q1; Q3]. WC — waist circumference; HC — hip circumference; BMI — body mass index; HbA1c — glycated hemoglobin; LDL — low-density lipoprotein; HDL — high-density lipoprotein; GFR — glomerular filtration rate; ASCVD — atherosclerotic cardiovascular disease; CKD — chronic kidney disease; FPG — fasting plasma glucose.
Описание выборки микробиотических образцов
Проведено секвенирование 99 образцов микробиоты, так как 1 образец исключен до проведения секвенирования ввиду нарушения правил сбора биоматериала.
Для каждого образца рассчитывали медиану расстояния до ближайшей 1/2 выборки. Полученное распределение расстояний аппроксимировали нормальным распределением, а образцы со значениями, превышающими 99-й перцентиль, рассматривали как выбросы. В результате 2 образца (DMT.92 и DMT.79) идентифицированы как выбросы и исключены из последующего анализа после секвенирования, поскольку не соответствовали пороговому значению минимально допустимого количества картирующихся ридов (≥3000 ридов на образец). Гистограмма распределения образцов по количеству полученных ридов представлена на рис. 2.
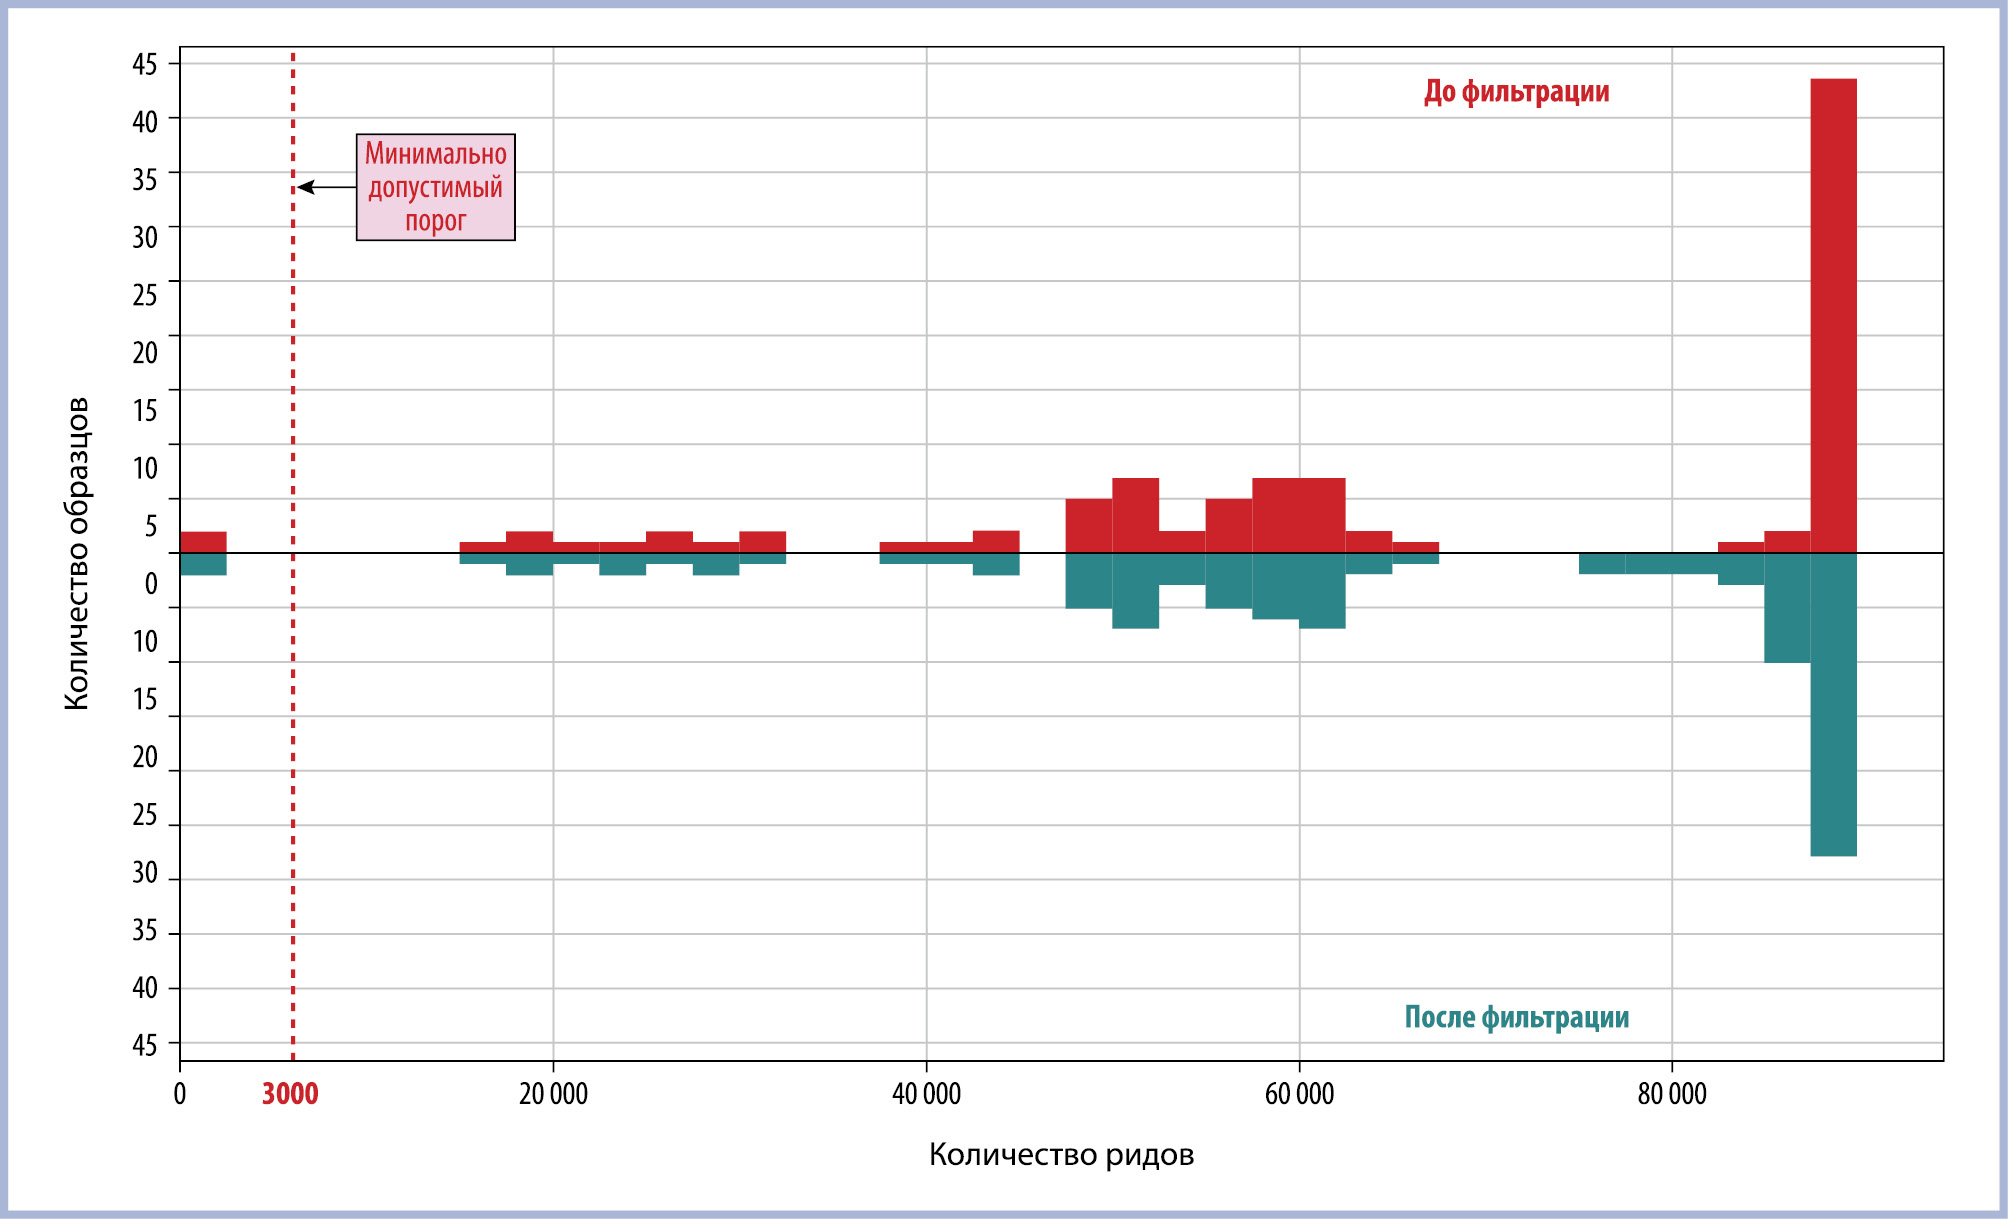
Рис. 2. Гистограмма распределения образцов по количеству полученных ридов на образец до (красным цветом) и после (зеленым цветом) фильтрации по аппаратным баллам.
Fig. 2.Histogram of sample distribution by the number of reads per sample before (red) and after (green) quality score filtering.
Альфа-разнообразие кишечной микробиоты
Альфа-разнообразие (α-разнообразие) — это числовое отражение видового разнообразия и функционального потенциала КМ [29]. В проведенном исследовании α-разнообразие оценивали с помощью индекса Шеннона, являющегося наиболее распространенным вариантом метрики микробиома кишечника [29]. У участников исследования среднее значение индекса Шеннона составляло 5,21±0,08 (95% ДИ 5,05—5,38). Полученные результаты сопоставимы с индексом α-разнообразия как здоровых людей, так и пациентов с СД2 [30]. Следовательно, КМ пациентов с впервые выявленным СД2 характеризуется высоким разнообразием представленных видов бактерий, а также высокими функциональными возможностями.
Бета-разнообразие кишечной микробиоты
С целью оценки однородности состава КМ пациентов с впервые выявленным СД2 были рассчитаны значения бета-разнообразия (β-разнообразия) для каждой пары образцов, так как β-разнообразие характеризует различие между двумя образцами КМ [31]. С помощью метода главных координат (PCoA — principal coordinate analysis) сконструирована модель, визуализирующая каждый образец в трехмерном пространстве. Расстояние между образцами (расстояние Брея—Кертиса) отражало различия в микробиоме. Чем больше было расстояние Брея—Кертиса между образцами, тем сильнее образцы отличались друг от друга по своему составу на родовом уровне. Это позволило провести поиск образцов-выбросов (т.е. образцов, разительно отличающихся от других по составу). Такими образцами являлись DMT.60, DMT.62, DMT.16, DMT.96. Однако большинство образцов имело аналогичный бактериальный состав. Полученный вывод является крайне важным отражением сходства состава КМ пациентов, включенных в исследование. Трехмерная модель, визуализирующая расстояния между образцами КМ с помощью метода главных координат, представлена на рис. 3.
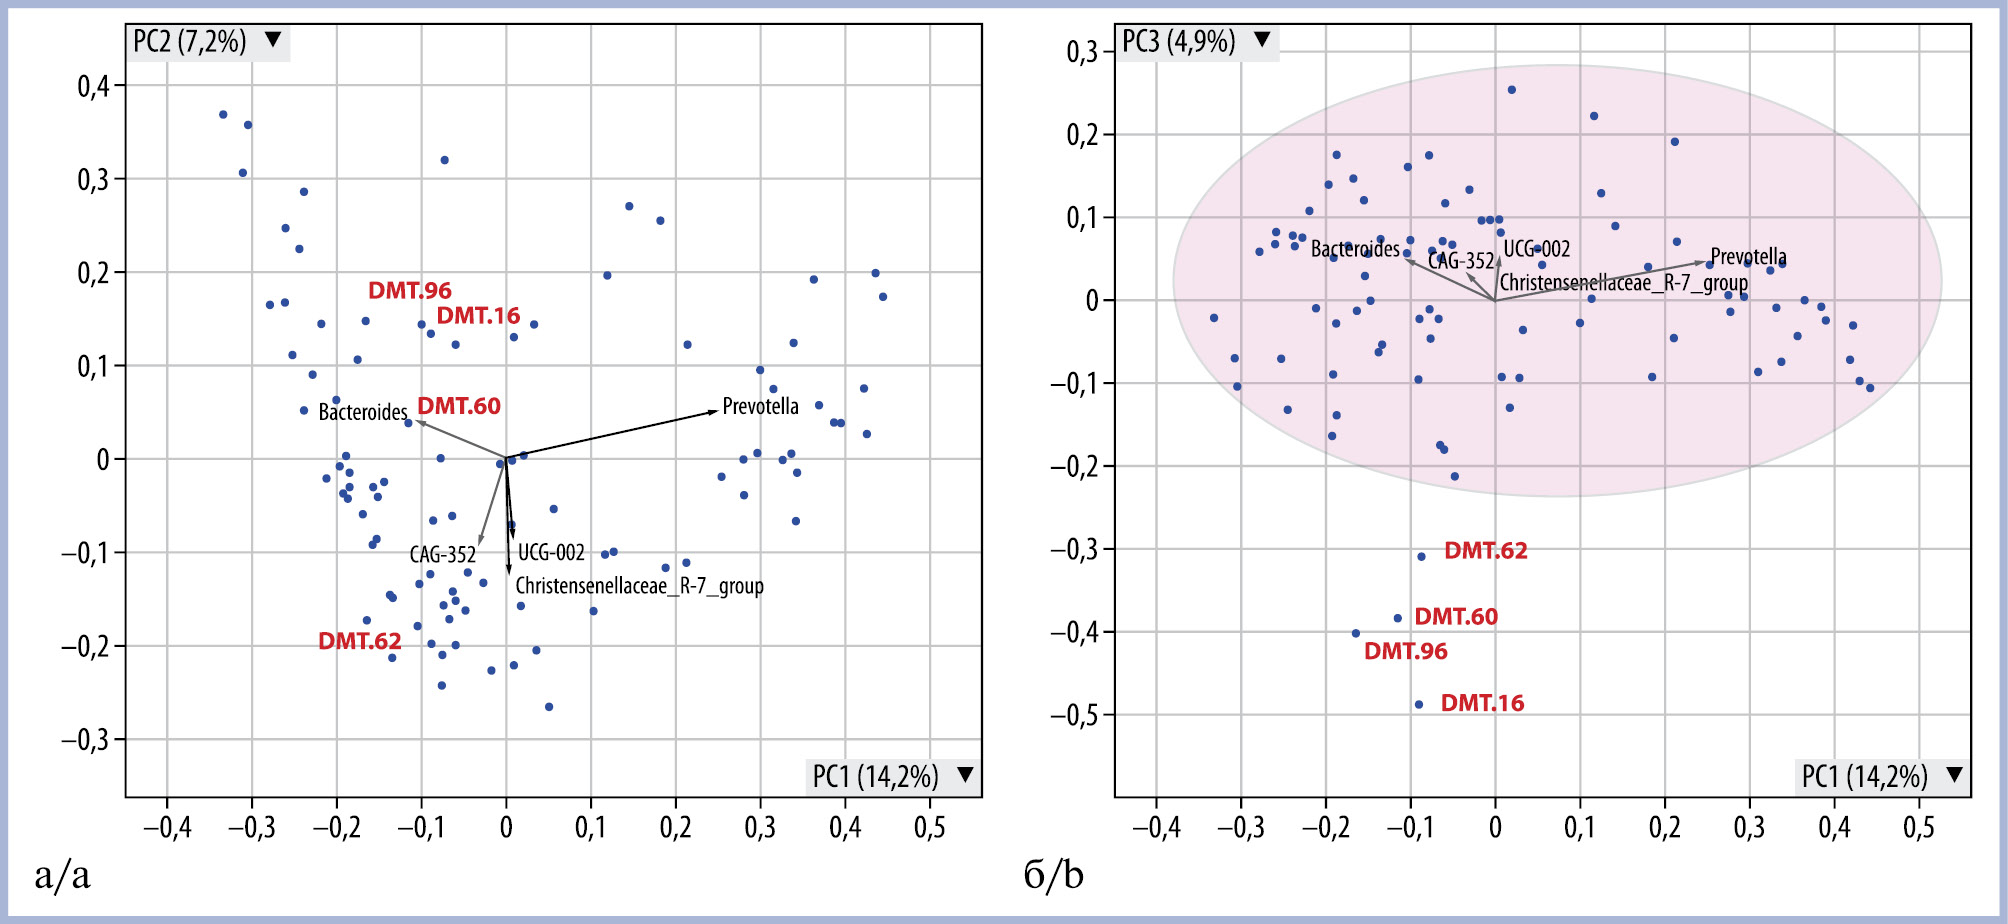
Рис. 3. Трехмерная модель, визуализирующая расстояния между образцами кишечной микробиоты.
а — первая и вторая координаты; б — первая и третья координаты, в круг собраны образцы кишечной микробиоты со схожим бактериальным составом (на родовом уровне). Наглядно показаны образцы-выбросы, которые не вошли в круг. PC1 — первая координата (PC — англ. principal coordinate); PC2 — вторая координата; PC3 — третья координата. Проценты в скобках означают процент вариации данных каждой из координат. Каждая точка соответствует образцу. Векторы показывают направления, в которых увеличиваются уровни соответствия основных родов. Красным цветом выделены образцы-выбросы: DMT.60, DMT.62, DMT.16, DMT.96.
Fig. 3.Three-dimensional model visualizing distances between gut microbiota (GM) samples.
a — first and second coordinates; b — first and third coordinates. PC1 — first coordinate (PC, principal coordinate); PC2 — second coordinate; PC3 — third coordinate. Percentages in parentheses indicate the proportion of variance explained by each coordinate. Each point represents an individual sample. Vectors indicate the directions of increasing contribution of the major genera. Outlier samples (DMT.60, DMT.62, DMT.16, DMT.96) are highlighted in red. In Panel B, samples with similar genus-level microbial composition are enclosed within a circle, whereas outlier samples are located outside this cluster.
Таксономический состав кишечной микробиоты у пациентов с сахарным диабетом 2 типа
Классическое описание таксономического состава КМ включает в себя оценку представленности бактерий на уровне типа, класса, отдела, семейства, рода и вида [32, 33].
В проведенном исследовании показано, что у пациентов с впервые выявленным СД2 преобладали типы Firmicutes — 51,136±1,486 (95% ДИ 48,187—54,085) и Bacteroidetes — 37,238±1,597 (95% ДИ 34,068—40,408). Менее представленными были типы Proteobacteria и Actinobacteriota, относительная численность которых составила 2,767 [1,68; 4,917] и 1,283 [0,683; 3,3] соответственно. Следовательно, состав КМ на уровне типа у пациентов с СД2 сопоставим с КМ здоровой популяции [32, 33]. Таксономический состав КМ на уровне типа представлен на рис. 4, а.
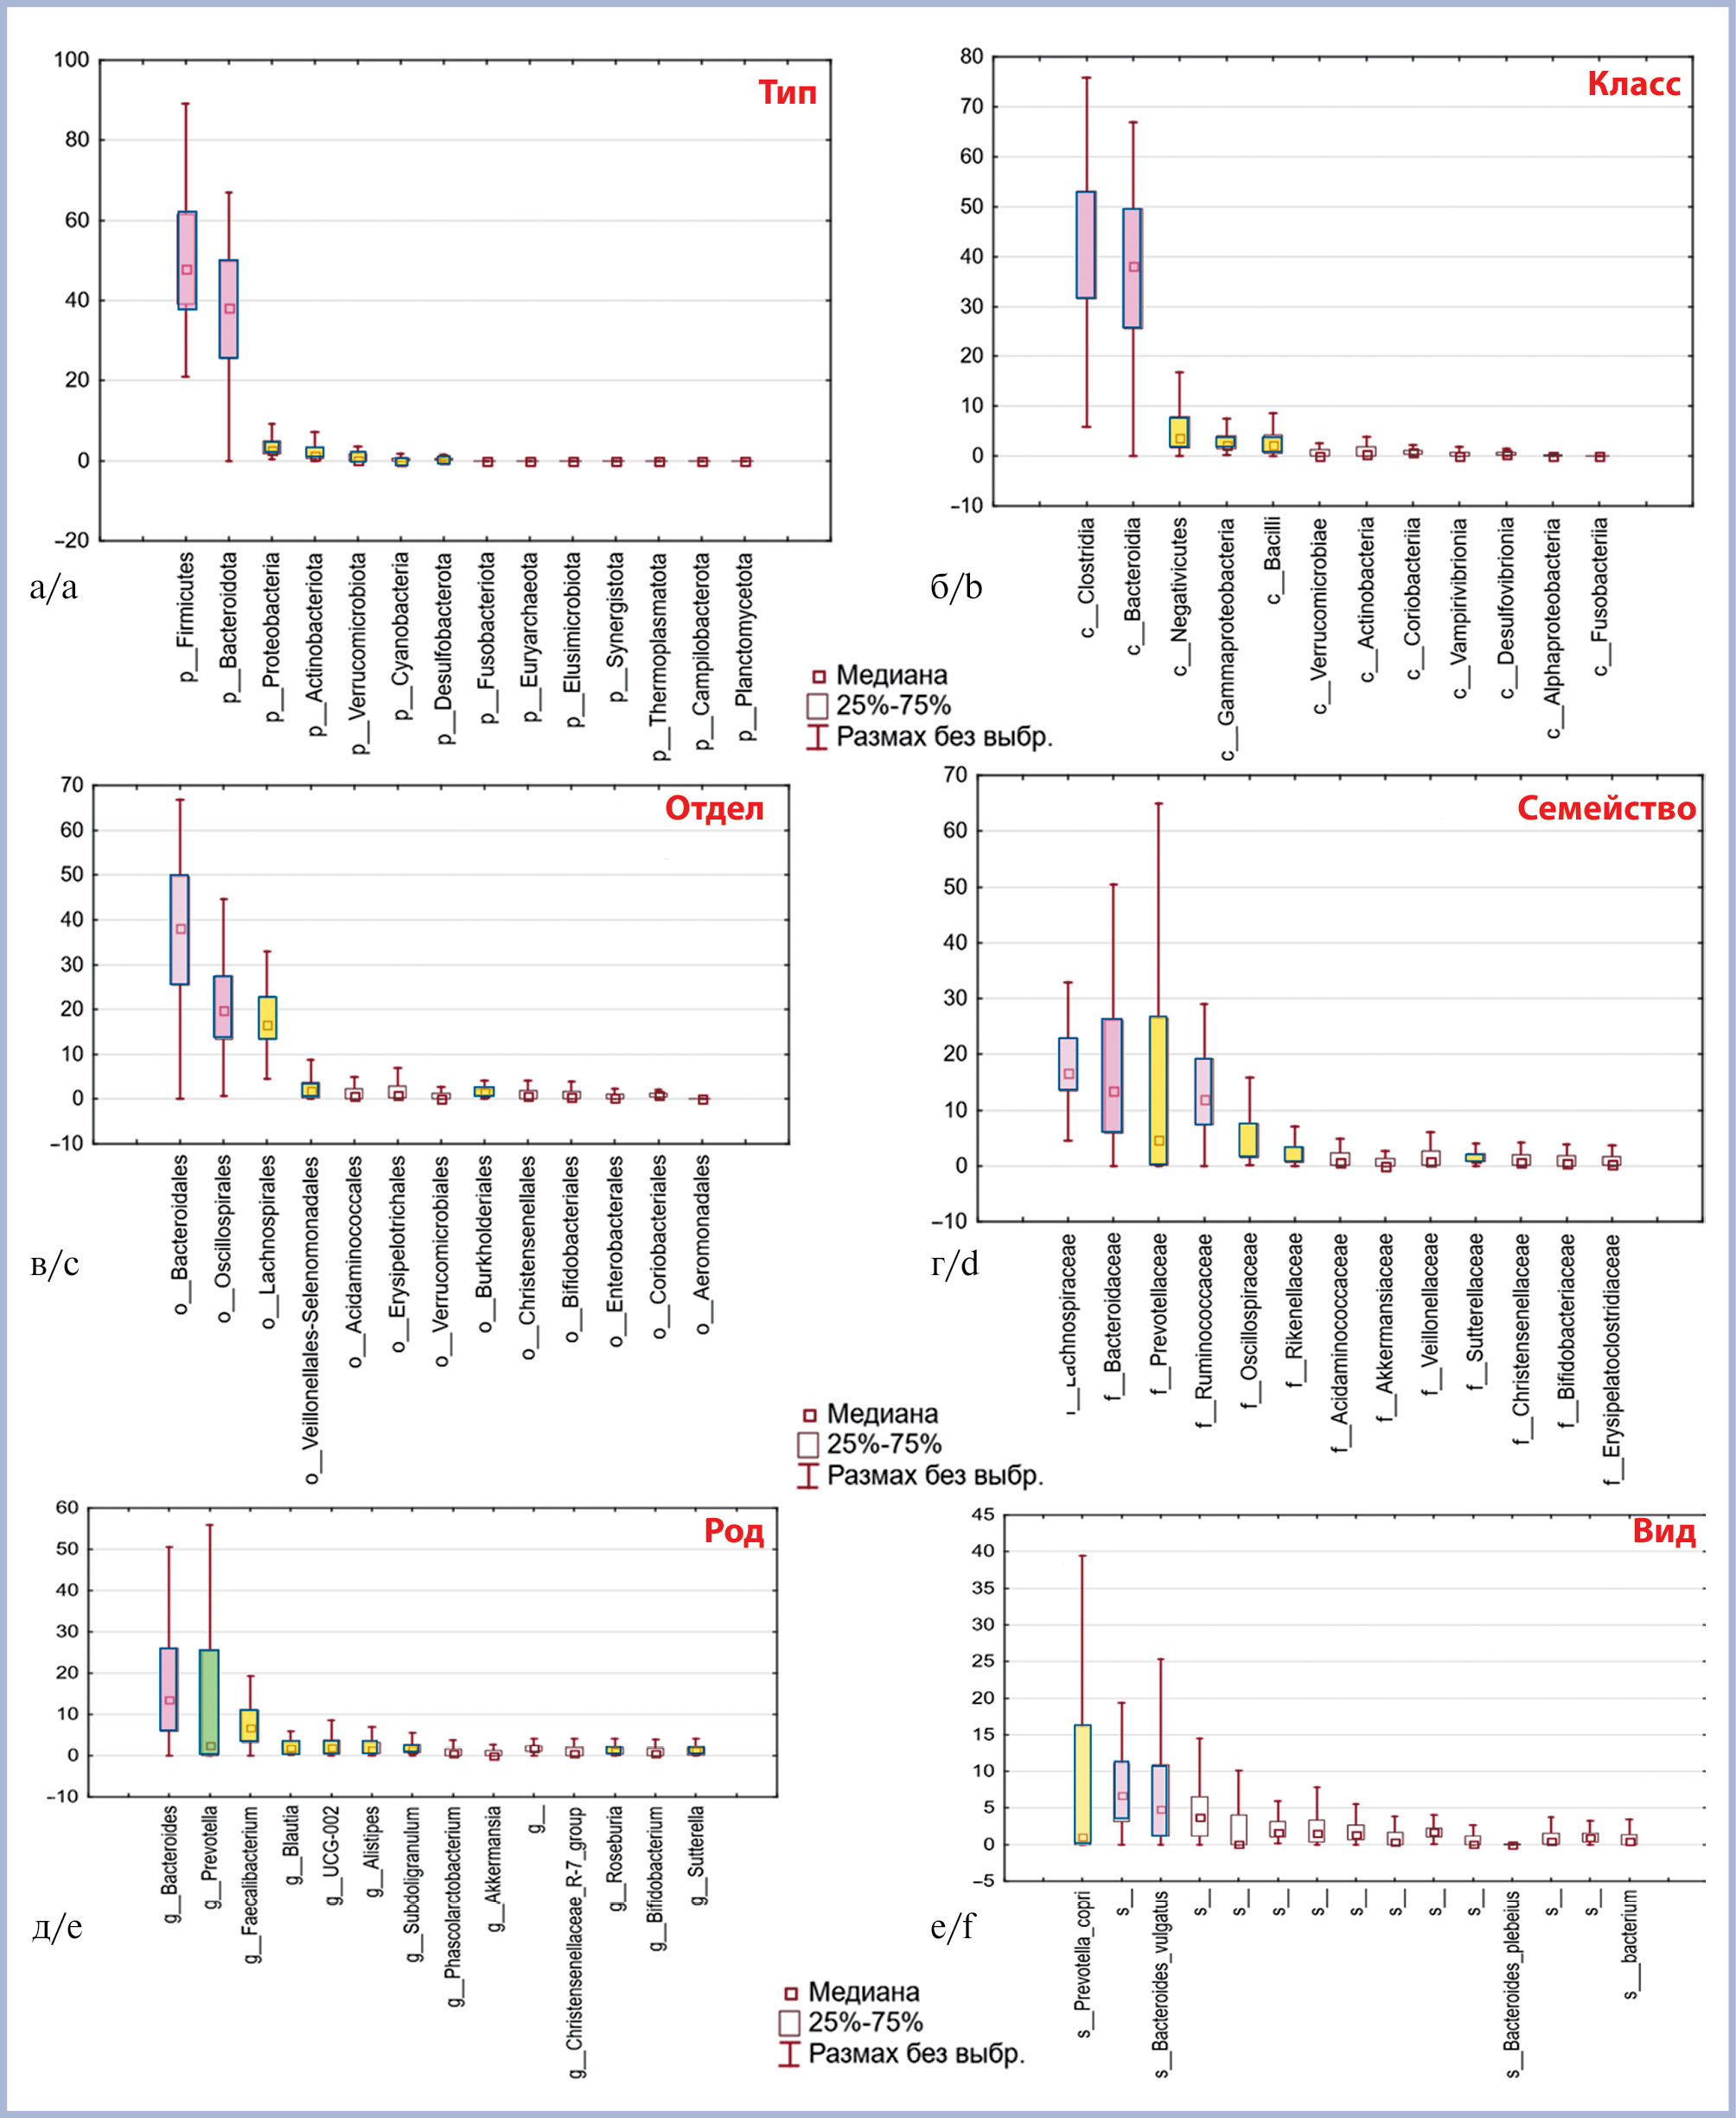
Рис. 4. Состав кишечной микробиоты у пациентов с впервые выявленным сахарным диабетом 2 типа.
а — на уровне типа; б — на уровне класса; в — на уровне порядка; г — на уровне семейства; д — на уровне рода; е — на уровне вида. Красным цветом обозначены наиболее представленные таксоны, желтым — менее представленные, белым — таксоны с минимальной или нулевой представленностью.
Fig. 4.Composition of the gut microbiota in patients with newly diagnosed type 2 diabetes mellitus.
a — at the phylum level; b — at the class level; c — at the order level; d — at the family level; e — at the genus level; f — at the species level. Red indicates the most abundant taxa, yellow indicates less abundant taxa, and white indicates taxa with minimal or zero abundance.
Наиболее представленными классами бактерий являлись Clostridia — 42,058±1,504 (95% ДИ 39,073—45,043), Bacteroidia — 37,231±1,597 (95% ДИ 34,061—40,402), Negativicutes — 3,667 [1,65; 7,95], Gammaproteobacteria — 2,283 [1,583; 4] и Bacilli — 2,15 [0,667; 4,167]. На уровне отдела доминировали Bacteroidales — 37,223±1,598 (95% ДИ 34,051—40,394) из типа Bacteroidetes, Oscillospirales — 20,224±1,043 (95% ДИ 18,154—22,293), Lachnospirales — 16,65 [13,483; 22,867], Veillonellales-Selenomonadales — 1,817 [0,217; 3,817] из типа Firmicutes, Burkholderiales — 1,55 [0,817; 2,167] из типа Proteobacteria. Таким образом, состав КМ на уровне класса и отдела преимущественно не отличался от состава у здоровых добровольцев европейской и американской популяций [32, 33]. Состав КМ на уровне класса представлен на рис. 4, б, на уровне отдела — на рис. 4, в.
Отличительной особенностью пациентов с впервые выявленным СД2 являлось численное превосходство семейства Lachnospiraceae (тип Firmicutes) над семейством Bacteroidaceae (тип Bacteroidetes): 16,65 [13,483; 22,867] и 13,5 [5,9; 26,167] соответственно. Для здоровой популяции характерно преимущественное доминирование семейства Bacteroidaceae [32—34], тогда как для пациентов с метаболическим синдромом свойственно увеличение численности Lachnospiraceae [35]. Менее распространенными семействами являлись Ruminococcaceae — 13,276±0,775 (95% ДИ 11,738—14,814), Prevotellaceae — 4,733 [0,233; 26,433], Oscillospiraceae — 3,983 [1,433; 7,633], Rikenellaceae — 1,683 [0,717; 3,433] и Sutterellaceae — 1,55 [0,817; 2,15], которые также широко представлены в составе КМ здоровых лиц [32—34]. Состав КМ на уровне семейства представлен на рис. 4, г.
На уровне рода у пациентов с впервые выявленным СД2 доминировали Bacteroides — 13,5 [5,9; 26,167]. Менее представленным был бутират-продуцирующий род Faecalibacterium — 7,68±0,585 (95% ДИ 6,519—8,841). Характерной особенностью являлось снижение представленности рода Prevotella — 2,583 [0,05; 25,4], который у здоровых лиц часто конкурирует с Bacteroides за доминирующее положение [19]. Кроме того, среди часто встречающихся родов отмечались Blautia — 1,733 [1,033; 3,167], который ассоциирован с нарушениями углеводного обмена, ожирением и атеросклеротическими сердечно-сосудистыми заболеваниями, и Alistipes — 1,483 [0,533; 3,25], который связан с развитием СД2 и АССЗ [11, 36—38]. Следовательно, родовое разнообразие характеризовалось высокой представленностью бактерий, связанных с нарушениями углеводного и липидного обменов. Состав КМ у пациентов с впервые выявленным СД2 на уровне рода представлен на рис. 4, д.
На видовом уровне наиболее частым представителем являлся безымянный вид, среднее значение которого составляло 7,68±0,585 (95% ДИ 6,519—8,841). Менее распространенными видами были Bacteroides vulgatus — 4,867 [1,183; 10,883] и Prevotella copri — 1,1 [0,017; 16,117], являющиеся типичными комменсалами КМ здорового человека [39]. При этом в данном исследовании наблюдалось численное преобладание B. vulgatus, тогда как для здоровой популяции характерно доминирование P. copri над B. vulgatus [39]. Кроме того, в КМ обследованных пациентов, помимо доминирующего неидентифицированного таксона, выявлен широкий спектр неидентифицированных бактерий, что может свидетельствовать об особенностях микробного разнообразия при впервые выявленном СД2. Состав КМ на уровне вида представлен на рис. 4, е.
Таким образом, для пациентов с СД2 характерны специфические изменения в таксономическом составе КМ на уровнях семейства, рода и вида. Так, на уровне семейства выявлено численное преимущество СД2-ассоциированных Lachnospiraceae над ключевыми доминантами здоровых людей (Bacteroidaceae). На родовом уровне наиболее распространенными представителями являлись Bacteroides, часто доминирующий у пациентов с СД2 [6], а также Blautia и Alistipes, ассоциированные не только с нарушениями углеводного обмена и ожирением, но и с АССЗ. На видовом уровне определены спектр ранее не описанных видов бактерий, а также инверсия представленности ключевых видовых доминант: P. copri и B. vulgatus, что может свидетельствовать об особенностях микробного профиля у пациентов с впервые выявленным СД2.
Энтеротипы пациентов с впервые выявленным сахарным диабетом 2 типа
В ходе исследования идентифицировано три ЭТ. Преобладал ЭТ-1 — встречался у 49,49% пациентов; ЭТ-2 и ЭТ-3 были представлены в сопоставимых долях — 26,8 и 23,71% соответственно.
Наибольшим разнообразием КМ характеризовался ЭТ-1, что подтверждается максимальным значением индекса Шеннона по сравнению с другими ЭТ: 5,8±0,06 (95% ДИ 5,67—5,92) — для ЭТ-1, 4,24 [3,84; 5,07] — для ЭТ-2 и 4,9±0,14 (95% ДИ 4,61—5,19) — для ЭТ-3 (p<0,001). Кроме того, ЭТ-1 был единственным ЭТ, в котором соотношение Firmicutes/Bacteroidetes (F/B) ≥1, что указывает на преобладание представителей типа Firmicutes. Наиболее распространенными родами в составе ЭТ-1 являлись Bacteroides, UCG-002, Faecalibacterium, Alistipes и Subdoligranulum. При этом относительная численность UCG-002, Alistipes и Subdoligranulum была максимальной по сравнению с другими энтеротипами. Более высокая представленность по сравнению с ЭТ-2 и ЭТ-3 отмечалась для Akkermansia, Christensenellaceae_R-7_group, Bifidobacterium и UCG-005. Следует отметить, что в составе ЭТ-1 наряду с родами, ассоциированными с повышенным риском СД2 (Bacteroides [6, 8], Alistipes [8]) и АССЗ (Alistipes [37]), были таксоны, потенциально обладающие протективным действием в отношении ИР (Christensenellaceae_R-7_group [40], UCG-005 [40]), углеводных нарушений (Faecalibacterium [11], Bifidobacterium [11], UCG-002 [16], Akkermansia [11, 41—48], Subdoligranulum [11], Christensenellaceae_R-7_group [48]) и ожирения (Christensenellaceae_R-7_group [47], Akkermansia [41]). С учетом разнонаправленного функционального потенциала входящих таксонов данный энтеротип, вероятно, ассоциирован со средним риском развития СД2 и его осложнений, при этом риск развития АССЗ может быть несколько выше вследствие высокой представленности Alistipes.
По сравнению с ЭТ-1 и ЭТ-3 ЭТ-2 характеризовался наименьшим родовым разнообразием, что подтверждается минимальными значениями индекса Шеннона. Кроме того, в составе ЭТ-2 преобладали бактерии типа Bacteroidetes: отношение F/B составляло 0,96 [0,57; 1,38]. Наиболее представленными родами в данном ЭТ являлись Bacteroides, Faecalibacterium и Blautia. При этом Bacteroides и Blautia демонстрировали наибольшую относительную численность по сравнению с ЭТ-1 и ЭТ-3, тогда как бутират-продуцирующий род Faecalibacterium был представлен в меньшей степени. Кроме того, ЭТ-2 характеризовался минимальной представленностью родов UCG-002 и Subdoligranulum. Следовательно, ЭТ-2 ассоциируется с повышенной представленностью бактерий, связанных с нарушениями углеводного и липидного обмена (Bacteroides [6, 8], Blautia [11, 12, 36, 38]), на фоне сниженной представленности бутират-продуцирующих таксонов, обладающих потенциально протективным действием в отношении метаболических нарушений (Faecalibacterium [11], UCG-002 [16], Subdoligranulum [11]). Скудное разнообразие кишечных представителей не способно нивелировать возможные пагубные эффекты доминирующих патогенных бактерий, что определяет данный ЭТ как наиболее неблагоприятный в отношении риска развития СД2 и его осложнений.
Отмечено, что ЭТ-3 характеризовался промежуточным уровнем родового разнообразия по сравнению с ЭТ-1 и ЭТ-2. В его составе преобладали представители типа Bacteroidetes, о чем свидетельствует соотношение F/B, составившее 4,9±0,14 (95% ДИ 4,61—5,19). Доминирующими родами в ЭТ-3 являлись Prevotella, Faecalibacterium и Bacteroides. Отличительными особенностями данного энтеротипа были преобладание Prevotella при относительно низкой представленности Bacteroides, а также наиболее высокая численность рода Alloprevotella по сравнению с другими энтеротипами. Важно, что в литературе представлены противоречивые данные о роли Prevotella и Alloprevotella в развитии углеводных нарушений: в одних исследованиях эти роды ассоциированы со снижением риска СД2 [6], тогда как в других — с его повышением [30]. Тем не менее ЭТ-3 по сравнению с другими ЭТ характеризуется более высокой численностью родов, встречающихся у здоровых людей, — Phascolarctobacterium [42] и Parabacteroides [44], а также наименьшим количеством СД2-ассоциированного рода Blautia [11, 12, 38] и рода Escherichia-Shigella [43], связанного с возникновением СД2 и диабетической нефропатии. Таким образом, ЭТ-3 представлен преимущественно бутират-продуцирующими бактериями, а также бактериями с благоприятным профилем влияния на углеводный обмен. Следовательно, ЭТ-3, по-видимому, связан с наименьшим риском развития и прогрессирования СД2 по сравнению с другими ЭТ. Сравнение разнообразия и представленности основных родов бактерий между ЭТ представлено в табл. 2.
Таблица 2. Сравнение разнообразия и представленности основных родов бактерий между энтеротипами
Table 2. Comparison of diversity and relative abundance of major bacterial genera across enterotypes
Параметр | Энтеротип | p | p1—2 | p1—3 | p2—3 | ||
ЭТ-1 (n=48)1 | ЭТ-2 (n=26)2 | ЭТ-3 (n=23)3 | |||||
Индекс Шенона | 5,8±0,06 (95% ДИ 5,67—5,92) | 4,24 [3,84; 5,07] | 4,9±0,14 (95% ДИ 4,61—5,19) | <0,001 | <0,001 | <0,001 | 0,012 |
F/B | 2,14 [1,32; 3,24] | 0,96 [0,57; 1,38] | 0,83 [0,66; 1,02] | <0,001 | <0,001 | <0,001 | >0,05 |
Род (Genus) | |||||||
Bacteroides | 13,717 [10,167; 24,767] | 28,311±3,63 (95% ДИ 20,835—35,787) | 5,167 [1,6; 11,317] | <0,001 | 0,006 | <0,001 | <0,001 |
Prevotella | 0,392 [0,033; 7,308] | 0,108 [0,017; 7,783] | 35,877±2,359 (95% ДИ 30,985—40,768) | <0,001 | >0,05 | <0,001 | <0,001 |
Faecalibacterium | 8,233 [4,683; 12,75] | 3,025 [0,467; 7,817] | 7,031±0,776 (95% ДИ 5,422—8,64) | 0,004 | 0,002 | >0,05 | 0,041 |
Blautia | 1,792 [1,133; 2,933] | 2,975 [1,3; 8,4] | 1,033 [0,9; 1,417] | <0,001 | 0,029 | 0,002 | 0,001 |
UCG-002 | 3,167 [2,192; 5,392] | 0,167 [0; 0,583] | 1,583 [0,633; 2,267] | <0,001 | <0,001 | <0,001 | <0,001 |
Alistipes | 2,45 [1,5; 3,817] | 0,642 [0,133; 1,683] | 0,733 [0,2; 1,183] | <0,001 | <0,001 | <0,001 | >0,05 |
Subdoligranulum | 2,025 [1,233; 3,167] | 0,517 [0,167; 1,333] | 0,967 [0,683; 1,617] | <0,001 | <0,001 | 0,002 | >0,05 |
Phascolarctobacterium | 0,45 [0; 1,533] | 0,1 [0; 1] | 1,5 [0,233; 7,567] | 0,014 | >0,05 | 0,016 | 0,011 |
Akkermansia | 0,2 [0; 4,067] | 0 [0; 0,217] | 0,033 [0; 0,517] | 0,023 | 0,029 | 0,036 | >0,05 |
Christensenellaceae_R-7_group | 1,533 [0,658; 4,075] | 0 [0; 0,15] | 0,35 [0,05; 0,867] | <0,001 | <0,001 | <0,001 | <0,001 |
Bifidobacterium | 0,817 [0,275; 2,458] | 0,183 [0; 1,617] | 0,1 [0; 0,533] | <0,001 | 0,010 | <0,001 | >0,05 |
Lachnoclostridium | 0,425 [0,175; 0,717] | 0,85 [0,25; 2,833] | 0,483 [0,267; 0,833] | 0,017 | 0,004 | >0,05 | >0,05 |
Coprococcus | 1,083 [0,5; 2,058] | 0,425 [0,183; 1,233] | 1,033 [0,383; 2,017] | 0,010 | 0,004 | >0,05 | 0,016 |
Escherichia-Shigella | 0,267 [0,05; 1,017] | 0,258 [0,067; 1,867] | 0 [0; 0,05] | <0,001 | >0,05 | <0,001 | <0,001 |
UCG-005 | 1,133 [0,575; 2,467] | 0,042 [0; 0,083] | 0,733 [0,033; 1,167] | <0,001 | <0,001 | 0,010 | <0,001 |
Parabacteroides | 1,083 [0,55; 1,5] | 0,95 [0,367; 1,783] | 0,483 [0,167; 0,783] | 0,005 | >0,05 | 0,001 | 0,016 |
Ruminococcus | 0,817 [0,283; 2,008] | 0,05 [0; 0,367] | 0,317 [0,117; 1,617] | <0,001 | <0,001 | >0,05 | 0,007 |
Lachnospira | 0,583 [0,35; 1,05] | 0,167 [0,017; 1,167] | 0,617 [0,45; 1,767] | 0,027 | 0,018 | >0,05 | 0,023 |
Alloprevotella | 0 [0; 0,1] | 0 [0; 0] | 1,1 [0; 4,217] | <0,001 | >0,05 | 0,003 | 0,003 |
Таким образом, в нашем исследовании выявлено три ЭТ, характеризующихся уникальным бактериальным разнообразием, определяющим, по всей видимости, специфические биологические эффекты всей КМ человека. Следовательно, методы выявления ЭТ у пациентов с углеводными нарушениями могут в будущем использоваться для разработки предсказательной модели оценки риска развития и прогрессирования СД2.
Микробиотические кооперативы у пациентов с впервые выявленным сахарным диабетом 2 типа
У пациентов с впервые выявленным СД2 обнаружено 10 МК, характеризующихся уникальным бактериальным составом. Однако только первые 4 МК являлись доминирующими. Выявлено, что МК-1 преобладал у 63,91% пациентов, МК-2 — у 9,28%, МК-3 — у 24,74%, МК-4 — у 2,06%.
Мы предполагаем, что доминирующий МК задает вектор функциональной активности для всего микробного сообщества и перекрывает возможные метаболические эффекты наименее представленных микробных общин. Именно поэтому в дальнейшем мы подробно охарактеризовали первые 4 МК. Бактериальный состав и представленность всех МК отражены на рис. 5, а—в.
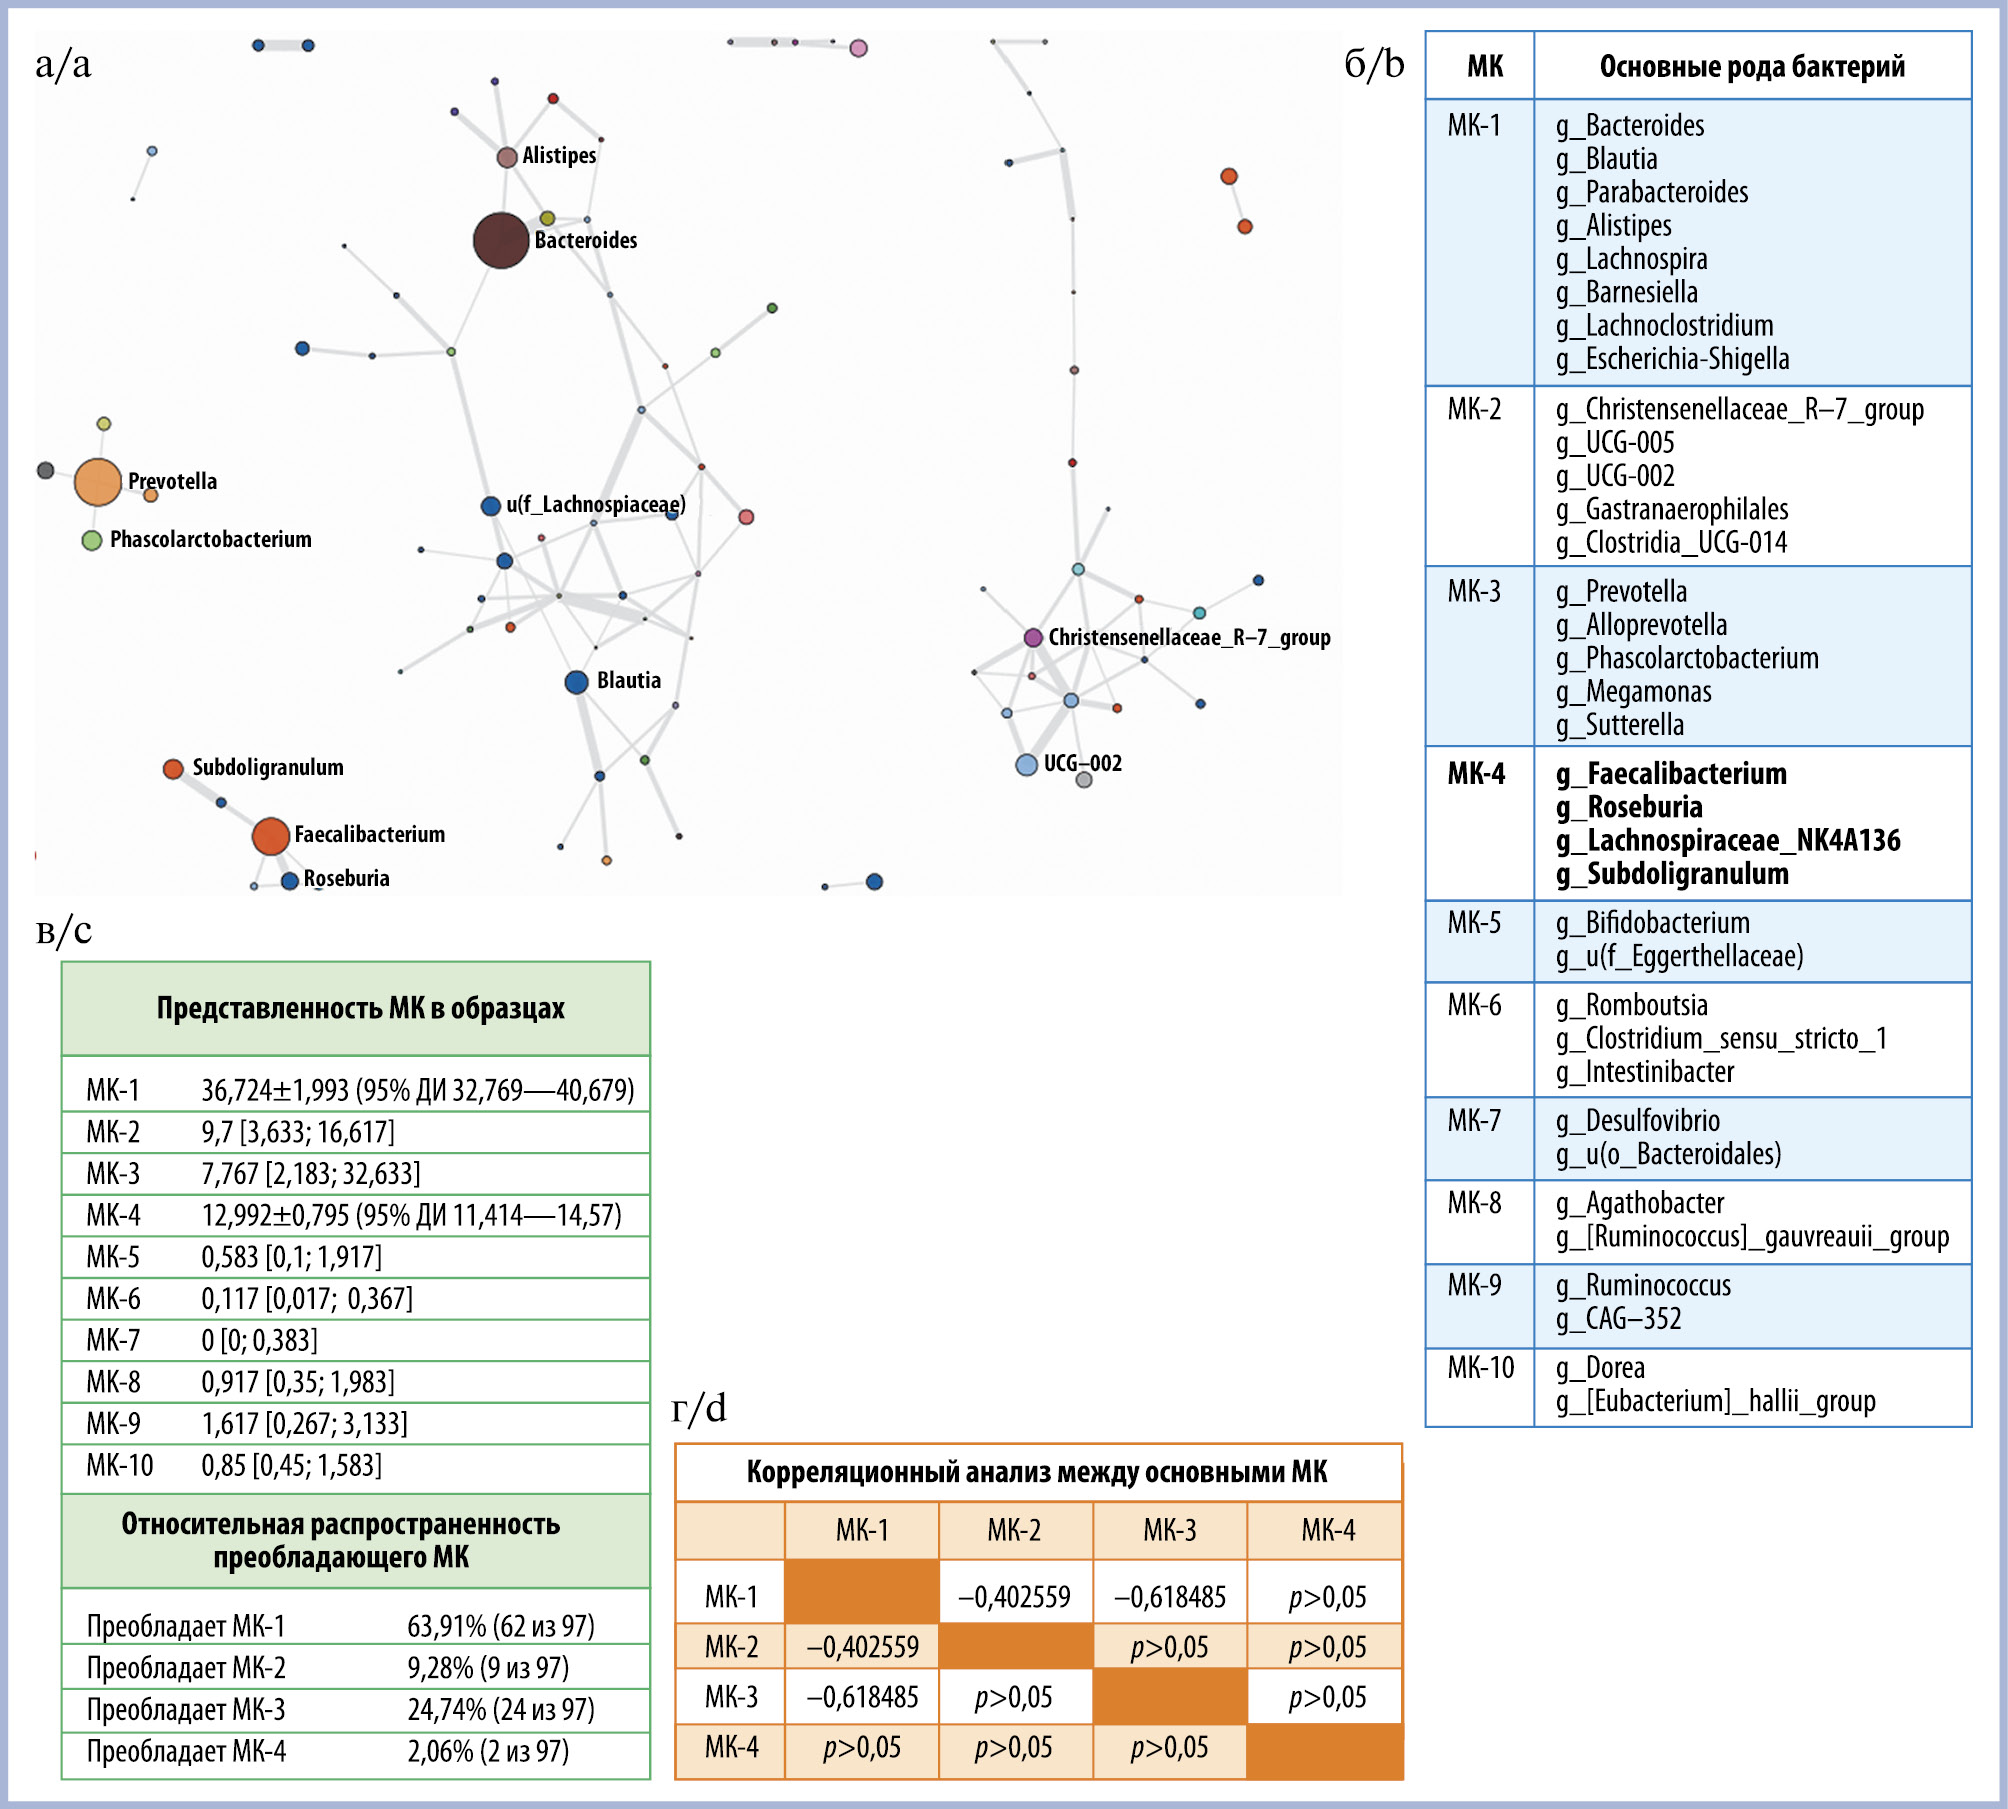
Рис. 5. Микробиотические кооперативы.
а — график сопредставленности родов. Изолированные компоненты соответствуют микробиотическим кооперативам. Каждая точка соответствует одному таксону, размер точки пропорционален относительной представленности бактерии. Линии соединяют таксоны из одного кооператива. Для наглядности таксоны-синглтоны (для которых не найдены существенно сопредставленные таксоны) не показаны. Совместная встречаемость родов микроорганизмов проанализирована на основе корреляционного анализа их относительной численности с использованием программного обеспечения SPIEC-EASI. Параметры алгоритма: метод выбора окрестностей Майнсгаузена—Бюльмана, минимальное значение λ=0,1, количество значений λ — 20, выбор модели осуществлялся с применением алгоритма StARS (количество подвыборок — 50); б — представленность основных родов бактерий в микробиотических кооперативах; в — относительная представленность микробиотических кооперативов у пациентов с сахарным диабетом 2 типа; г — корреляционный анализ между основными микробиотическими кооперативами. Коэффициент ранговой корреляции rxy Спирмена (для ненормального распределения) и Пирсона (для нормального распределения). Значения коэффициента корреляции выделены красным цветом при уровне значимости корреляционной связи p<0,05. При отсутствии достоверности корреляционной связи указывалось значение p>0,05.
Fig. 5.Microbiota-based cooperative networks.
a — co-occurrence network of bacterial genera. Isolated components correspond to microbiota-based cooperatives (MCs). Each node represents a taxon, with node size proportional to its relative abundance. Edges connect taxa belonging to the same cooperative. For clarity, singleton taxa (those without statistically significant co-occurrence relationships) are not shown. Co-occurrence patterns of microbial genera were inferred based on correlation analysis of their relative abundances using the SPIEC-EASI framework. Algorithm parameters were as follows: Meinshausen–Bühlmann neighborhood selection (MB), minimum λ=0.1, number of λ values=20, and model selection performed using the StARS algorithm (50 subsamples). b — relative abundance of major bacterial genera within MCs. c — relative abundance of MCs among patients with type 2 diabetes mellitus (T2DM). d — correlation analysis between major MCs. Correlation coefficients were calculated using Spearman’s rank correlation (for non-normally distributed data) and Pearson’s correlation coefficient (for normally distributed data). Statistically significant correlations (p<0.05) are highlighted in red; non-significant associations are indicated as p>0.05.
Показано, что МК-1 характеризовался преобладанием родов Bacteroides, Blautia, Parabacteroides, Alistipes, Barnesiella, Lachnoclostridium и Escherichia-Shigella. Следует отметить, что Bacteroides [6, 8], Blautia [11, 12, 38], Alistipes [8], Lachnoclostridium [45] и Escherichia-Shigella [43] ассоциированы с развитием СД2. При этом род Blautia также положительно связан с ожирением [36, 46] и АССЗ [46], Alistipes — с АССЗ [37], а Escherichia-Shigella — с развитием диабетической нефропатии [43]. В то же время в составе МК-1 есть отдельные роды, отрицательно ассоциированные с риском СД2, в частности Parabacteroides [44] и Barnesiella [13]. С учетом выявленного бактериального профиля МК-1, вероятно, характеризуется высокой ассоциацией с развитием СД2 и его осложнений.
Отмечено, что МК-2 представлен таксонами Christensenellaceae_R-7_group, UCG-005, UCG-002, Gastranaerophilales и Clostridia_UCG-014. При этом Gastranaerophilales [48], UCG-005 [48] и UCG-002 [16] ассоциированы со снижением риска развития СД2, тогда как Christensenellaceae_R-7_group характеризуется отрицательной корреляцией как с риском СД2, так и с ожирением [40, 47, 48]. В то же время Clostridia_UCG-014 ассоциирован с повышением уровней глюкозы плазмы крови натощак, ОХ и массы тела у лабораторных животных, а также с развитием гестационного СД (ГСД) у мексиканских женщин [49, 50]. С учетом разнонаправленного влияния входящих таксонов можно предположить, что МК-2 ассоциирован со средним риском развития СД2 при относительно низком риске его осложнений. При этом развитие СД2 в рамках данного кооператива, вероятно, происходит на фоне нормальной массы тела или ее незначительного увеличения, что может быть связано с присутствием Christensenellaceae_R-7_group.
Выявлено, что МК-3 характеризовался наличием родов Prevotella, Alloprevotella, Megamonas и Sutterella. Следует отметить дискордантность эффектов доминирующих бактерий в отношении углеводного обмена. Так, в ряде исследований род Prevotella ассоциирован с нормогликемией [6, 51], тогда как в других работах родственные таксоны Prevotella и Alloprevotella связаны с развитием предиабета и СД2 [30]. Кроме того, отмечается разнонаправленное влияние на углеводный и липидный обмен со стороны Sutterella [52] и Megamonas [53]: Sutterella обратно коррелирует с уровнем ГПН и положительно ассоциирована с антиатерогенными ЛПВП, тогда как Megamonas демонстрирует положительную ассоциацию с уровнем HbA1c и ожирением. С учетом разнонаправленного влияния входящих таксонов на углеводный обмен МК-3, вероятно, ассоциирован со средним риском развития СД2 и его осложнений; при этом развитие заболевания может происходить на фоне ожирения, что, по-видимому, связано с присутствием Megamonas.
Сообщается, что МК-4 характеризуется высокой представленностью ключевых продуцентов КЦЖК, обладающих противовоспалительным потенциалом и способствующих поддержанию барьерной функции кишечника в отношении эндотоксинов и липополисахаридов: Faecalibacterium, Roseburia, Lachnospiraceae_NK4A136_group и Subdoligranulum. Указанные таксоны ассоциированы со снижением риска развития СД2 (Faecalibacterium [11, 54], Roseburia [11, 54], Subdoligranulum [54], Lachnospiraceae_NK4A136_group [54]) и ожирения (Faecalibacterium [55], Roseburia [55]). В то же время имеются данные о том, что избыточная представленность Faecalibacterium может быть связана с развитием ИР, что, вероятно, обусловлено повышенной продукцией КЦЖК, способных накапливаться в метаболически активных тканях и обусловливать формирование ИР [16]. Несмотря на это, МК-4, по-видимому, ассоциирован с наименьшим риском развития СД2 и его осложнений по сравнению с другими МК.
В дальнейшем мы провели корреляционный анализ между основными МК для того, чтобы определить, влияет ли представленность одного МК на другие микробные сообщества. Мы выявили обратную связь между МК-1 и МК-2 (r=–0,402, p<0,05), МК-1 и МК-3 (r=–0,618, p<0,05). Таким образом, результаты исследования показали, что МК-1 является ведущим, доминирующим МК, регулирующим численность других микробных сообществ и определяющим функциональные возможности КМ в отношении развития СД2. Корреляционный анализ между основными МК представлен на рис. 5, г.
Таким образом, для пациентов с впервые выявленным СД2 характерно преобладание 4 МК, из которых МК-1, вероятно, является наиболее значимым предиктором развития углеводных нарушений.
Обсуждение
Принято рассматривать КМ как один из ключевых факторов патогенеза СД2 [2]. Вместе с тем ее таксономический состав, а также распределение ЭТ и МК у пациентов с СД2 остаются недостаточно изученными как в российской популяции, так и в международных исследованиях. Выявление закономерностей изменения состава КМ на всех уровнях таксономии, а также между различными ЭТ и МК может послужить основой для разработки предсказательной модели оценки риска развития и прогрессирования СД2. Таким образом, в настоящее время перспективным научным направлением является изучение состава КМ у пациентов с впервые выявленным СД2, которые ранее не получали ССТ, способную изменять бактериальный состав кишечника [3].
Таксономический состав кишечной микробиоты у пациентов с сахарным диабетом 2 типа
В проведенном исследовании изучен состав КМ на всех ступенях таксономической лестницы. Значимых различий в бактериальном разнообразии по сравнению со здоровой популяцией на уровне типа, класса и отдела не было [8, 34, 48]. Более того, полученные нами данные в отношении кишечного разнообразия на уровне типа, класса и отдела сопоставимы с данными других исследований, изучающих состав КМ у пациентов с СД2 [4—8]. На уровне семейства результаты настоящего исследования продемонстрировали высокую представленность Lachnospiraceae у пациентов с СД2. При этом относительная численность данного семейства превышала таковую для Bacteroidaceae, являющегося доминирующим и наиболее распространенным семейством у здоровых лиц [8, 34, 48]. Сопоставимые данные получены в исследовании G. Maskarinec и соавт., в котором также отмечено увеличение численности Lachnospiraceae у пациентов с СД2 [10]. Кроме того, в ряде работ показано, что представленность данного семейства возрастает при предиабете, ожирении и метаболическом синдроме [35, 38]. Таким образом, результаты настоящего исследования согласуются с ранее опубликованными данными и подтверждают численное преобладание семейства Lachnospiraceae у пациентов с СД2.
При изучении состава КМ на уровне рода также выявлены различия в родовом разнообразии кишечной микробиоты у пациентов с впервые выявленным СД2 по сравнению со здоровыми людьми, описанными в ранее опубликованных работах. Согласно имеющимся данным, для здоровой популяции характерно преобладание родов Bacteroides и Prevotella, при этом доминирование того или иного рода определяется особенностями образа жизни, питания, этнической принадлежности и культурных факторов. В частности, для популяций с традиционно растительным рационом чаще характерно преобладание Prevotella, тогда как при западном типе питания — Bacteroides [56]. Более того, микробиота здоровых лиц характеризуется высокой представленностью бутират-продуцирующих бактерий, таких как Ruminococcus и Faecalibacterium [8, 48, 57]. В исследуемой когорте, несмотря на высокую представленность Bacteroides и Faecalibacterium, отмечены снижение представленности Prevotella, а также низкая относительная численность Ruminococcus, являющегося одним из ключевых продуцентов бутирата. Одновременно выявлена высокая представленность Blautia, ассоциированного с риском развития ожирения, предиабета, СД2 и АССЗ, а также Alistipes, связанного с развитием СД2 и АССЗ [36—38]. Следует отметить, что в недавно опубликованном исследовании PREDIMED-Plus показано, что род Faecalibacterium был положительно ассоциирован с индексом ИР (HOMA-IR) у пациентов с избыточной массой тела или ожирением без СД2 [16]. Следовательно, высокая представленность Faecalibacterium у пациентов с впервые выявленным СД2, предположительно, могла являться триггером развития заболевания за счет первоочередного возникновения ИР.
Видовое разнообразие КМ участников проведенного исследования характеризовалось наличием ряда неидентифицированных таксонов, а также высокой представленностью B. vulgatus и P. copri. При этом более высокое относительное значение характерно для P. copri. Важно, что характерной особенностью КМ здоровой популяции является доминирование P. copri над B. vulgatus, а также отсутствие неидентифицированных таксонов, тогда как для пациентов с СД2 свойственна инверсия относительной представленности P. copri и B. vulgatus, которая также наблюдалась и в проведенном исследовании [39, 58, 59].
Таким образом, для пациентов с впервые выявленным СД2, проживающих в Москве, свойственны высокое разнообразие семейства Lachnospiraceae и родов Blautia и Alistipes, связанных с развитием углеводных нарушений, ожирением и АССЗ, а также инверсия представленности ключевых видовых доминант: P. copri и B. vulgatus на фоне целого спектра неидентифицированных таксонов, что, вероятно, может являться подтверждением уникального состава КМ у пациентов с впервые выявленным СД2. Тем не менее мы не исключаем вероятность ограничения метода оценки состава КМ: ампликонного секвенирования гена 16S рРНК бактерий, при котором некоторые уже описанные виды бактерий не определены в нашем исследовании.
Характеристика энтеротипов и их влияние на развитие и прогрессирование сахарного диабета 2 типа
Регион проживания, культурные предпочтения, особенности питания и образа жизни определяют устойчивый к внешним воздействиям, способный к частичному восстановлению и существенно не изменяющийся в течение жизни человека вариант микробного состава кишечника — ЭТ [19]. У здоровых людей выявлено три ЭТ: Bacteroides, Prevotella и Ruminococcus [19]. Предполагается, что ЭТ определяют функциональные возможности КМ, следовательно, одни ЭТ могут снижать, а другие — увеличивать риск развития ряда патологических состояний, в том числе СД2. Тем не менее в настоящее время резко ограничены данные о составе и количестве ЭТ у пациентов с СД2. Более того, в литературе отсутствует описание предполагаемой роли каждого ЭТ на основании его уникального бактериального состава в возникновении углеводных и липидных нарушений. Однако в будущем такие работы могли бы определить вектор дальнейших исследований, посвященных изучению взаимосвязи КМ с возникновением СД2. Тем самым результаты проведенного нами исследования являются уникальными, позволяющими не только описать состав каждого из выявленных ЭТ, но и предположить связь этих ЭТ с риском развития и прогрессирования СД2.
В настоящем исследовании охарактеризован состав ЭТ у пациентов с впервые выявленным СД2: ЭТ-1 и ЭТ-2 характеризовались доминированием рода Bacteroides, а ЭТ-3 — Prevotella. Тем самым, в отличие от здоровой популяции, у участников исследования не выявлен ЭТ Ruminococcus, а также отмечалось деление ЭТ Bacteroides на два отдельных кластера (ЭТ-1 и ЭТ-2) [19]. Полученные результаты отличались от ранее опубликованных данных: у китайских пациентов не отмечено подразделение ЭТ Bacteroides на подтипы, вместе с тем идентифицированы ЭТ Bacteroides и ЭТ Prevotella на фоне отсутствия ЭТ Ruminococcus [6]. В отличие от указанного исследования, в настоящей работе дополнительно проведено сравнение относительной представленности родов между ЭТ, что позволило идентифицировать доминирующие таксоны и продемонстрировать различия бактериального состава каждого ЭТ. На основании полученных данных предположено, что специфический микробный профиль каждого ЭТ может быть связан с фенотипическими особенностями пациентов, а также с риском развития и прогрессирования СД2 и его осложнений. Так, вероятно, ввиду высокого разнообразия родов бактерий, обладающих дискордантными эффектами в отношении развития углеводных нарушений (Bacteroides [6, 8], Alistipes [8] ассоциированы с повышением риска; Christensenella [48], Akkermansia [11, 48], UCG-002 [16], Bifidobacterium [11], Faecalibacterium [11, 54] — со снижением риска), а также наличия бактерий, отрицательно связанных с ожирением (Christensenella [47], Akkermansia [41], Faecalibacterium [55]), ЭТ-1 ассоциирован со средним риском развития СД2 и его осложнений на фоне нормальной или избыточной массы тела. Кроме того, ЭТ-2, представленный преимущественно родами, связанными с нарушениями углеводного и липидного обмена (Bacteroides [6, 8], Blautia [11, 12, 38]), а также с ожирением (Blautia [36]), вероятно, ассоциирован с высоким риском развития СД2, его прогрессирования и осложнений, включая АССЗ. Напротив, ЭТ-3 характеризуется высокой представленностью таксонов, типичных для микробиоты здоровых лиц (Phascolarctobacterium [42], Parabacteroides [44], Prevotella [6, 51]), что позволяет рассматривать его как наиболее благоприятный с точки зрения риска развития СД2 и его осложнений. Предположительная предсказательная модель СД2 в зависимости от бактериального состава ЭТ представлена в табл. 3.
Таблица 3. Предположительная предсказательная модель сахарного диабета 2 типа в зависимости от бактериального состава энтеротипов
Table 3.Proposed predictive model of type 2 diabetes mellitus based on the bacterial composition of enterotypes
ЭТ | Роды, ассоциированные с повышенным риском СД2 | Роды, ассоциированные со сниженным риском СД2 | Предполагаемые эффекты | ||
ЭТ-1 | Bacteroides | Положительно связан с СД2 [6, 8] | Faecalibacterium | Отрицательно связан с СД2 [11, 54] и ожирением [55] | СД2 на фоне нормальной или избыточной массы тела. — Средний риск развития СД2 и его осложнений (в т.ч. АССЗ) — Умеренное прогрессирование заболевания |
Faecalibacterium | Положительно связан с HOMA-IR [16] | Christensenellaceae_R-7_group | Отрицательно связан с ИР [40], СД2 [48] и ожирением [47] | ||
Akkermansia | Отрицательно связан с СД2 [11, 48] и ожирением [41] | ||||
Alistipes | Положительно связан с СД2 [8], АССЗ [37] | UCG-002 | Отрицательно связан с HOMA-IR [16] | ||
Bifidobacterium | Отрицательно связаны с СД2 [11] | ||||
ЭТ-2 | Bacteroides (наибольшая представленность по сравнению с ЭТ-1 и ЭТ-3) | Положительно связан с СД2 [6, 8] | Faecalibacterium (наименьшая представленность по сравнению с ЭТ-1 и ЭТ-3) | Отрицательно связан с СД2 [11, 54] и ожирением [55] | СД2 с выраженными нарушениями углеводного и липидного обмена, ожирением. — Высокий риск развития СД2 и его осложнений (в т.ч. АССЗ) — Быстрое прогрессирование |
Blautia | Положительно связан с СД2 [11, 12, 38], ожирением [36] и АССЗ [46] | ||||
Faecalibacterium | Положительно связан с HOMA-IR [16] | ||||
ЭТ-3 | Bacteroides (менее представлен по сравнению с ЭТ-1 и ЭТ-2) | Положительно связан с СД2 [6, 8] | Prevotella (наибольшая представленность по сравнению с ЭТ-1 и ЭТ-3) | Отрицательно связан с СД2 [6, 51] | Легкое течение СД2 или ранние стадии заболевания, чаще на фоне нормальной или умеренно повышенной массы тела. — Низкий риск развития СД2 — Медленное прогрессирование и низкий риск осложнений |
Prevotella (наибольшая представленность по сравнению с ЭТ-1 и ЭТ-3) | Положительно связан с СД2 в единичных работах [30] | ||||
Alloprevotella | Положительно связан с СД2 в единичных работах [30] | Phascolarctobacterium | Здоровые люди [42] | ||
Parabacteroides | Снижает HOMA-IR, здоровые люди [44] | ||||
Примечание. Здесь и в табл. 4: ЭТ — энтеротип; СД2 — сахарный диабет 2-го типа; HOMA-IR — индекс инсулинорезистентности; АССЗ — атеросклеротические сердечно-сосудистые заболевания. Зеленый цвет — низкий риск; желтый цвет — средний риск; красный цвет — высокий риск.
Таким образом, для пациентов с впервые выявленным СД2 характерно наличие трех ЭТ, бактериальный состав которых, предположительно, предопределяет риск развития и прогрессирования СД2. Тем не менее необходимо проведение более масштабных исследований, изучающих как особенности состава ЭТ у пациентов с СД2, так и взаимосвязь этих ЭТ с фенотипическими и клиническими характеристиками пациентов. Результаты этих исследований смогли бы лечь в основу разработки предсказательной модели развития СД2 и его осложнений, а также использоваться при выборе стартовой ССТ.
Характеристика микробиотических кооперативов и их влияние на развитие и прогрессирование сахарного диабета 2 типа
Энтеротип представляет собой относительно устойчивое сообщество кишечных микроорганизмов, характерное для конкретного индивидуума [19]. Однако внутри каждого ЭТ содержится целый спектр микроорганизмов с различными функциями и биологическими эффектами. При этом кишечные представители, обладающие однонаправленным вектором функциональной активности, могут образовывать сообщества — МК (ранее в литературе использовались понятия «кооператив» или «сети взаимодействия бактерий) [22—24]. Таким образом, у каждого человека внутри ЭТ может выявляться несколько МК. В частности, O. Volokh и соавт. обнаружили наличие трех МК у здоровых лиц [22]. В то же время у пациентов с СД2 ранее описывались преимущественно отдельные сети взаимодействий наиболее распространенных бактерий, тогда как полный спектр микробных сообществ оставался недостаточно охарактеризованным [23, 24]. Тем не менее мы не только описали все выявленные МК у пациентов с СД2, но и предположили, что доминирующий МК за счет своего родового разнообразия предопределяет функциональные возможности всей КМ человека. Из 10 выявленных МК детально проанализированы 4 наиболее представленных: МК-1 — у 63,91% пациентов, МК-2 — у 9,28%, МК-3 — у 24,74% и МК-4 — у 2,06%.
В частности, МК-1 характеризовался высокой представленностью родов, ассоциированных с развитием СД2 (Bacteroides [6, 8], Blautia [11, 12, 38], Lachnoclostridium [45], Escherichia-Shigella [42]), диабетической нефропатии (Escherichia-Shigella [42]), ожирения (Blautia [36]) и АССЗ (Alistipes [37]).
Отмечено, что МК-2 включал как таксоны, положительно ассоциированные с нарушениями углеводного и липидного обмена (Clostridia_UCG-014 [49, 50]), так и бактерии с потенциально протективным эффектом в отношении СД2 (Christensenellaceae_R-7_group [40, 48], UCG-005 [30, 40], UCG-002 [16], Gastranaerophilales [48]) и ожирения (Christensenellaceae_R-7_group [47]).
МК-3 характеризовался высокой представленностью родов, типичных для микробиоты здоровых лиц, в том числе ассоциированных с средиземноморским типом питания (Prevotella [6, 51], Phascolarctobacterium [42], Megamonas [53], Sutterella [52]), при наличии таксонов, потенциально связанных с развитием СД2 (Alloprevotella [30]).
Показано, что МК-4 был представлен преимущественно бактериями, отрицательно ассоциированными с развитием СД2 (Faecalibacterium [11, 54], Roseburia [11, 54], Lachnospiraceae_NK4A136_group [54], Subdoligranulum [11, 54]) и ожирения (Faecalibacterium [55], Roseburia [55]).
Таким образом, бактериальный состав выявленных МК кардинально отличался от состава МК здоровых пациентов [22].
Принимая во внимание уникальный бактериальный состав каждого МК, мы предположили, что доминирующий МК у конкретного человека определяет риск развития СД2 и его осложнений, а также предсказывает фенотип пациентов с данным заболеванием. Следовательно, МК-1 ассоциирован с высоким риском развития СД2 и его осложнений, МК-2 и МК-3 — со средним риском, МК-4 — с низким. Более благоприятный бактериальный профиль МК-2 по сравнению с МК-3, вероятно, ассоциирован с менее выраженной гипергликемией и более медленным прогрессированием заболевания. Предполагаемая прогностическая модель развития и прогрессирования СД2 в зависимости от доминирующего микробиотического кооператива представлена в табл. 4.
Таблица 4. Предполагаемая прогностическая модель сахарного диабета 2 типа в зависимости от бактериального состава доминирующих микробиотических кооперативов
Table 4.Proposed prognostic model of type 2 diabetes mellitus based on the bacterial composition of dominant microbiota-based cooperatives
МК | Роды, ассоциированные с повышенным риском СД2 | Роды, ассоциированные со сниженным риском СД2 | Предполагаемые эффекты | ||
МК-1 | Bacteroides | Положительно связан с СД2 [6, 8] | Parabacteroides [44] | Отрицательно связан с СД2, снижает инсулинорезистентность | СД2 с выраженными нарушениями углеводного и липидного обмена, ожирением. — Высокий риск развития СД2 и его осложнений (в т.ч. АССЗ) — Высокий риск прогрессирования |
Blautia | Положительно связан с СД2 [11, 12, 38], ожирением [36] и АССЗ [46] | Barnesiella [13] | Отрицательно связан с СД2 | ||
Lachnoclostridium | Положительно связан с СД2 [45] | ||||
Escherichia-Shigella | Положительно связан с СД2 и дыхательной недостаточностью [43] | ||||
Alistipes | Положительно связан с СД2 [8] и АССЗ [37] | ||||
МК-2 | Clostridia_UCG-014 | Положительно связан с ожирением, дислипидемией у лабораторных животных и гестационным СД у беременных [49, 50] | Christensenellaceae_R-7_group | Отрицательно связан с СД2 [40, 48] и ожирением [47] | СД2 на фоне незначительного избытка массы тела, с возможной дислипидемией и умеренной гипергликемией. — Средний риск развития СД2 — Низкий риск прогрессирования и осложнений |
UCG-005 | Отрицательно связан с HOMA-IR [40], СД2 [30] | ||||
UCG-002 | Отрицательно связан с HOMA-IR [16] | ||||
Gastranaerophilales | Отрицательно связан с СД2 [48] | ||||
МК-3 | Alloprevotella | Положительно связан с предиабетом и СД2 [40] | Prevotella | Отрицательно связан с СД2 [6, 51] | СД2, вероятно, на фоне ожирения. — Средний риск развития СД2 и его осложнений (в т.ч. АССЗ) — Умеренное прогрессирование |
Prevotella | Положительно связан с предиабетом и СД2 [40] | Sutterella | Отрицательно связан с СД2 и АССЗ [52] | ||
Megamonas | Положительно связан с СД2 и ожирением [53] | Phascolarctobacterium | Здоровые люди [42] | ||
МК-4 | — | — | Faecalibacterium | Отрицательно связан с СД2 [11, 54] и ожирением [55] | СД2 без ожирения, с легкой гипергликемией. — Низкий риск развития СД2 и его осложнений — Медленное прогрессирование |
Roseburia | Отрицательно связан с СД2 [11, 54] и ожирением [55] | ||||
Lachnospiraceae_NK4A136_group | Отрицательно связан с СД2 [54] | ||||
Subdoligranulum | Отрицательно связан с СД2 [11, 54] | ||||
Таким образом, у пациентов с впервые выявленным СД2 выявлено четыре доминирующих МК, бактериальный состав которых, вероятно, ассоциирован с риском развития и прогрессирования заболевания. Вместе с тем данное исследование носит пилотный характер и определяет направления дальнейшего изучения качественного и количественного состава МК у пациентов с СД2, в том числе в контексте их взаимосвязи с клиническими, патофизиологическими и фенотипическими характеристиками пациентов.
Ограничения исследования
Одним из ограничений проведенного исследования являлось отсутствие контрольной группы, что не позволяло достоверно оценивать особенности изменения состава КМ у пациентов с впервые выявленным СД2 по сравнению со здоровыми добровольцами. Важно, что полученные нами данные о таксономическом составе КМ сравнивались с крупнейшими исследованиями состава МК у здоровых людей (MetaHIT и HMP) [8, 48]. Однако участники данных исследований отличались от участников проведенного нами исследования по возрасту, региону проживания, особенностям питания и образу жизни. Именно поэтому вывод о том, что таксономический состав КМ пациентов с впервые выявленным СД2, проживающих в Москве, отличается от такового в здоровой популяции, не совсем корректен; результаты последующих исследований смогли бы подтвердить или опровергнуть полученные нами данные. Тем не менее наши данные существенно расширяют научное представление о составе КМ у пациентов с впервые выявленным СД2, ранее не получавших ССТ и проживающих в московском регионе.
Еще одним ограничением исследования являлась оценка состава КМ с помощью метода ампликонного секвенирования гена 16S рРНК бактерий, при котором некоторые уже описанные виды бактерий, по-видимому, не были идентифицированы, так как не включены в используемый нами биобанк SILVA v138. Тем самым в настоящее время затруднительно оценить характер изменения состава КМ на видовом уровне и не совсем корректно выявленные безымянные виды бактерий ассоциировать с уникальным видовым составом у пациентов с впервые выявленным СД2.
Результаты проведенного исследования показали, что использовать таксономический состав КМ для разработки предсказательной модели развития СД2 в настоящее время не совсем корректно, так как применение ампликонного секвенирования гена 16S рРНК бактерий не позволяет полноценно выстроить функциональную иерархию бактерий и определить доминирующую активность всего микробного сообщества. Напротив, идентификация и описание уникальных по своему родовому разнообразию ЭТ и МК у пациентов с впервые выявленным СД2 позволили оттолкнуться от оценки кишечного многообразия на всех ступенях таксономической лестницы и показали возможность использования методов выявления ЭТ и МК для определения функционального потенциала всей КМ, способной влиять на риск развития СД2 и характер прогрессирования данного заболевания.
Заключение
Пациенты с впервые выявленным сахарным диабетом 2 типа характеризуются повышенной представленностью семейства Lachnospiraceae, а также родов Blautia и Alistipes, наличием ряда неидентифицированных таксонов и преобладанием Bacteroides vulgatus над Prevotella copri в составе кишечной микробиоты. Кроме того, для данной когорты характерно наличие трех энтеротипов и четырех доминирующих микробиотических кооперативов, отличающихся по своему бактериальному составу и потенциально ассоциированных с риском развития сахарного диабета 2 типа и особенностями его прогрессирования. Вместе с тем необходимы дальнейшие исследования, направленные на изучение не только родового состава и относительной представленности энтеротипов и микробиотических кооперативов у пациентов с впервые выявленным сахарным диабетом 2 типа, но и их взаимосвязи с фенотипическими, клиническими, лабораторными и гормональными характеристиками. Комплексный анализ этих взаимосвязей может способствовать разработке прогностических моделей оценки риска развития сахарного диабета 2 типа и его осложнений, а также расширить представления о выборе стартовой сахароснижающей терапии.
Участие авторов:
Концепция и дизайн исследования —Теплова А.С.
Сбор и обработка материала — Лобанова К.Г., Демидова Т.Ю.
Статистический анализ данных — Лобанова К.Г.
Написание текста — Лобанова К.Г.
Редактирование — Демидова Т.Ю., Теплова А.С.
Авторы заявляют об отсутствии конфликта интересов.
Authors’ contribution:
Study design and concept — Teplova A.S.
Data collection and processing — Lobanova K.G., Demidova T.Yu.
Statistical analysis — Lobanova K.G.
Text writing — Lobanova K.G.
Editing — Demidova T.Yu., Teplova A.S.
The authors declare no conflicts of interest.
- Дедов И.И., Шестакова М.В., Викулова О.К., Железнякова А.В., Исаков М.А., Сазонова Д.В., Мокрышева Н.Г. Сахарный диабет в Российской Федерации: динамика эпидемиологических показателей по данным Федерального регистра сахарного диабета за период 2010—2022 гг. Сахарный диабет. 2023;26(2):104-123. https://doi.org/10.14341/DM13035
- Schwartz SS, Epstein S, Corkey BE, Grant SFA, Gavin JR III, Aguilar RB. A unified pathophysiological construct of diabetes and its complications. Trends in Endocrinology and Metabolism. 2017;28(9):645-655. https://doi.org/10.1016/j.tem.2017.05.005
- Crudele L, Gadaleta RM, Cariello M, Moschetta A. Gut microbiota in the pathogenesis and therapeutic approaches of diabetes. EBioMedicine. 2023;97:104821. https://doi.org/10.1016/j.ebiom.2023.104821
- Doumatey AP, Adeyemo A, Zhou J, Lei L, Adebamowo SN, Adebamowo C, Rotimi CN. Gut microbiome profiles are associated with type 2 diabetes in urban Africans. Frontiers in Cellular and Infection Microbiology. 2020;10:63. https://doi.org/10.3389/fcimb.2020.00063
- Zhao X, Zhang Y, Guo R, Yu W, Zhang F, Wu F, Shang J. The alteration in composition and function of gut microbiome in patients with type 2 diabetes. Journal of Diabetes Research. 2020;2020:8842651. https://doi.org/10.1155/2020/8842651
- Wang J, Li W, Wang C, Wang L, He T, Hu H, Song J, Cui C, Qiao J, Qing L, Li L, Zang N, Wang K, Wu C, Qi L, Ma A, Zheng H, Hou X, Liu F, Chen L. Enterotype Bacteroides is associated with a high risk in patients with diabetes: a pilot study. Journal of Diabetes Research. 2020;2020:6047145. https://doi.org/10.1155/2020/6047145
- Larsen N, Vogensen FK, van den Berg FW, Nielsen DS, Andreasen AS, Pedersen BK, Al-Soud WA, Sørensen SJ, Hansen LH, Jakobsen M. Gut microbiota in human adults with type 2 diabetes differs from non-diabetic adults. PLoS One. 2010;5(2):e9085. https://doi.org/10.1371/journal.pone.0009085
- Gradisteanu Pircalabioru G, Chifiriuc MC, Picu A, Petcu LM, Trandafir M, Savu O. Snapshot into the type-2-diabetes-associated microbiome of a Romanian cohort. International Journal of Molecular Sciences. 2022;23(23):15023. https://doi.org/10.3390/ijms232315023
- Егшатян Л.В., Ткачева О.Н., Каштанова Д.А., Дудинская Е.Н., Бойцов С.А. «Маркерные» изменения состава микробиоты кишечника у пациентов с нарушениями углеводного обмена. Экспериментальная и клиническая гастроэнтерология. 2019;172(12):51-60. https://doi.org/10.31146/1682-8658-ecg-172-12-51-60
- Maskarinec G, Raquinio P, Kristal BS, Setiawan VW, Wilkens LR, Franke AA, Lim U, Le Marchand L, Randolph TW, Lampe JW, Hullar MAJ. The gut microbiome and type 2 diabetes status in the Multiethnic Cohort. PLoS One. 2021;16(6):e0250855. https://doi.org/10.1371/journal.pone.0250855
- Gurung M, Li Z, You H, Rodrigues R, Jump DB, Morgun A, Shulzhenko N. Role of gut microbiota in type 2 diabetes pathophysiology. EBioMedicine. 2020;51:102590. https://doi.org/10.1016/j.ebiom.2019.11.051
- Cunningham AL, Stephens JW, Harris DA. Gut microbiota influence in type 2 diabetes mellitus (T2DM). Gut Pathogens. 2021;13(1):50. https://doi.org/10.1186/s13099-021-00446-0
- Que Y, Cao M, He J, Zhang Q, Chen Q, Yan C, Lin A, Yang L, Wu Z, Zhu D, Chen F, Chen Z, Xiao C, Hou K, Zhang B. Gut bacterial characteristics of patients with type 2 diabetes mellitus and the application potential. Frontiers in Immunology. 2021;12:722206. https://doi.org/10.3389/fimmu.2021.722206
- Umirah F, Neoh CF, Ramasamy K, Lim SM. Differential gut microbiota composition between type 2 diabetes mellitus patients and healthy controls: a systematic review. Diabetes Research and Clinical Practice. 2021;173:108689. https://doi.org/10.1016/j.diabres.2021.108689
- Inoue R, Ohue-Kitano R, Tsukahara T, Tanaka M, Masuda S, Inoue T, Yamakage H, Kusakabe T, Hasegawa K, Shimatsu A, Satoh-Asahara N. Prediction of functional profiles of gut microbiota from 16S rRNA metagenomic data provides a more robust evaluation of gut dysbiosis occurring in Japanese type 2 diabetic patients. Journal of Clinical Biochemistry and Nutrition. 2017;61(3):217-221. https://doi.org/10.3164/jcbn.17-44
- Atzeni A, Bastiaanssen TFS, Cryan JF, Tinahones FJ, Vioque J, Corella D, Fitó M, Vidal J, Moreno-Indias I, Gómez-Pérez AM, Torres-Collado L, Coltell O, Castañer O, Bulló M, Salas-Salvadó J. Taxonomic and functional fecal microbiota signatures associated with insulin resistance in non-diabetic subjects with overweight/obesity within the frame of the PREDIMED-Plus study. Frontiers in Endocrinology. 2022;13:804455. https://doi.org/10.3389/fendo.2022.804455
- Frank DN, St Amand AL, Feldman RA, Boedeker EC, Harpaz N, Pace NR. Molecular-phylogenetic characterization of microbial community imbalances in human inflammatory bowel diseases. Proceedings of the National Academy of Sciences of the United States of America. 2007;104(34):13780-13785. https://doi.org/10.1073/pnas.0706625104
- Wang S, Mu L, Yu C, He Y, Hu X, Jiao Y, Xu Z, You S, Liu SL, Bao H. Microbial collaborations and conflicts: unraveling interactions in the gut ecosystem. Gut Microbes. 2024;16(1):2296603. https://doi.org/10.1080/19490976.2023.2296603
- Arumugam M, Raes J, Pelletier E, Le Paslier D, Yamada T, Mende DR, Fernandes GR, Tap J, Bruls T, Batto JM, Bertalan M, Borruel N, Casellas F, Fernandez L, Gautier L, Hansen T, Hattori M, Hayashi T, Kleerebezem M, Kurokawa K, Leclerc M, Levenez F, Manichanh C, Nielsen HB, Nielsen T, Pons N, Poulain J, Qin J, Sicheritz-Ponten T, Tims S, Torrents D, Ugarte E, Zoetendal EG, Wang J, Guarner F, Pedersen O, de Vos WM, Brunak S, Doré J; MetaHIT Consortium; Antolín M, Artiguenave F, Blottiere HM, Almeida M, Brechot C, Cara C, Chervaux C, Cultrone A, Delorme C, Denariaz G, Dervyn R, Foerstner KU, Friss C, van de Guchte M, Guedon E, Haimet F, Huber W, van Hylckama-Vlieg J, Jamet A, Juste C, Kaci G, Knol J, Lakhdari O, Layec S, Le Roux K, Maguin E, Mérieux A, Melo Minardi R, M’rini C, Muller J, Oozeer R, Parkhill J, Renault P, Rescigno M, Sanchez N, Sunagawa S, Torrejon A, Turner K, Vandemeulebrouck G, Varela E, Winogradsky Y, Zeller G, Weissenbach J, Ehrlich SD, Bork P. Enterotypes of the human gut microbiome. Nature. 2011;473(7346):174-180. https://doi.org/10.1038/nature09944
- Simonet C, McNally L. Kin selection explains the evolution of cooperation in the gut microbiota. Proceedings of the National Academy of Sciences of the United States of America. 2021;118(6):e2016046118. https://doi.org/10.1073/pnas.2016046118
- Figueiredo ART, Kramer J. Cooperation and conflict within the microbiota and their effects on animal hosts. Frontiers in Ecology and Evolution. 2020;8:132. https://doi.org/10.3389/fevo.2020.00132
- Volokh O, Klimenko N, Berezhnaya Y, Tyakht A, Nesterova P, Popenko A, Alexeev D. Human gut microbiome response induced by fermented dairy product intake in healthy volunteers. Nutrients. 2019;11(3):547. https://doi.org/10.3390/nu11030547
- Das T, Jayasudha R, Chakravarthy S, Prashanthi GS, Bhargava A, Tyagi M, Rani PK, Pappuru RR, Sharma S, Shivaji S. Alterations in the gut bacterial microbiome in people with type 2 diabetes mellitus and diabetic retinopathy. Scientific Reports. 2021;11(1):2738. https://doi.org/10.1038/s41598-021-82538-0
- Li Q, Chang Y, Zhang K, Chen H, Tao S, Zhang Z. Implication of the gut microbiome composition of type 2 diabetic patients from northern China. Scientific Reports. 2020;10(1):5450. https://doi.org/10.1038/s41598-020-62224-3
- Efimova D, Tyakht A, Popenko A, Vasilyev A, Altukhov I, Dovidchenko N, Odintsova V, Klimenko N, Loshkarev R, Pashkova M, Elizarova A, Voroshilova V, Slavskii S, Pekov Y, Filippova E, Shashkova T, Levin E, Alexeev D. Knomics-Biota: a system for exploratory analysis of human gut microbiota data. BioData Mining. 2018;11:25. https://doi.org/10.1186/s13040-018-0187-3
- Holmes I, Harris K, Quince C. Dirichlet multinomial mixtures: generative models for microbial metagenomics. PLoS One. 2012;7(2):e30126. https://doi.org/10.1371/journal.pone.0030126
- Kurtz ZD, Müller CL, Miraldi ER, Littman DR, Blaser MJ, Bonneau RA. Sparse and compositionally robust inference of microbial ecological networks. PLoS Computational Biology. 2015;11(5):e1004226. https://doi.org/10.1371/journal.pcbi.1004226
- Suzuki Y, Ikeda K, Sakuma K, Kawai S, Sawaki K, Asahara T, Takahashi T, Tsuji H, Nomoto K, Nagpal R, Wang C, Nagata S, Yamashiro Y. Association between yogurt consumption and intestinal microbiota in healthy young adults differs by host gender. Frontiers in Microbiology. 2017;8:847. https://doi.org/10.3389/fmicb.2017.00847
- Kim BR, Shin J, Guevarra R, Lee JH, Kim DW, Seol KH, Lee JH, Kim HB, Isaacson R. Deciphering diversity indices for a better understanding of microbial communities. Journal of Microbiology and Biotechnology. 2017;27(12):2089-2093. https://doi.org/10.4014/jmb.1709.09027
- Zhang Z, Tian T, Chen Z, Liu L, Luo T, Dai J. Characteristics of the gut microbiome in patients with prediabetes and type 2 diabetes. Peer J. 2021;9:e10952. https://doi.org/10.7717/peerj.10952
- Gail MH, Wan Y, Shi J. Power of microbiome beta-diversity analyses based on standard reference samples. American Journal of Epidemiology. 2021;190(3):439-447. https://doi.org/10.1093/aje/kwaa204
- Hugon P, Dufour JC, Colson P, Fournier PE, Sallah K, Raoult D. A comprehensive repertoire of prokaryotic species identified in human beings. The Lancet Infectious Diseases. 2015;15(10):1211-1219. https://doi.org/10.1016/S1473-3099(15)00293-5
- Human Microbiome Project Consortium. Structure, function and diversity of the healthy human microbiome. Nature. 2012;486(7402):207-214. https://doi.org/10.1038/nature11234
- King CH, Desai H, Sylvetsky AC, LoTempio J, Ayanyan S, Carrie J, Crandall KA, Fochtman BC, Gasparyan L, Gulzar N, Howell P, Issa N, Krampis K, Mishra L, Morizono H, Pisegna JR, Rao S, Ren Y, Simonyan V, Smith K, VedBrat S, Yao MD, Mazumder R. Baseline human gut microbiota profile in healthy people and standard reporting template. PLoS One. 2019;14(9):e0206484. https://doi.org/10.1371/journal.pone.0206484
- Chávez-Carbajal A, Nirmalkar K, Pérez-Lizaur A, Hernández-Quiroz F, Ramírez-Del-Alto S, García-Mena J, Hernández-Guerrero C. Gut microbiota and predicted metabolic pathways in a sample of Mexican women affected by obesity and obesity plus metabolic syndrome. International Journal of Molecular Sciences. 2019;20(2):438. https://doi.org/10.3390/ijms20020438
- Ozato N, Saito S, Yamaguchi T, Katashima M, Tokuda I, Sawada K, Katsuragi Y, Kakuta M, Imoto S, Ihara K, Nakaji S. Blautia genus associated with visceral fat accumulation in adults 20—76 years of age. NPJ Biofilms and Microbiomes. 2019;5(1):28. https://doi.org/10.1038/s41522-019-0101-x
- Parker BJ, Wearsch PA, Veloo ACM, Rodriguez-Palacios A. The genus Alistipes: gut bacteria with emerging implications to inflammation, cancer, and mental health. Frontiers in Immunology. 2020;11:906. https://doi.org/10.3389/fimmu.2020.00906
- Lippert K, Kedenko L, Antonielli L, Kedenko I, Gemeier C, Leitner M, Kautzky-Willer A, Paulweber B, Hackl E. Gut microbiota dysbiosis associated with glucose metabolism disorders and the metabolic syndrome in older adults. Beneficial Microbes. 2017;8(4):545-556. https://doi.org/10.3920/BM2016.0184
- Yang J, Pu J, Lu S, Bai X, Wu Y, Jin D, Cheng Y, Zhang G, Zhu W, Luo X, Rosselló-Móra R, Xu J. Species-level analysis of human gut microbiota with metataxonomics. Frontiers in Microbiology. 2020;11:2029. https://doi.org/10.3389/fmicb.2020.02029
- Chen Z, Radjabzadeh D, Chen L, Kurilshikov A, Kavousi M, Ahmadizar F, Ikram MA, Uitterlinden AG, Zhernakova A, Fu J, Kraaij R, Voortman T. Association of insulin resistance and type 2 diabetes with gut microbial diversity: a microbiome-wide analysis from population studies. JAMA Network Open. 2021;4(7):e2118811. https://doi.org/10.1001/jamanetworkopen.2021.18811
- Zhou Q, Zhang Y, Wang X, Yang R, Zhu X, Zhang Y, Chen C, Yuan H, Yang Z, Sun L. Gut bacteria Akkermansia is associated with reduced risk of obesity: evidence from the American Gut Project. Nutrition and Metabolism. 2020;17:90. https://doi.org/10.1186/s12986-020-00516-1
- Wu F, Guo X, Zhang J, Zhang M, Ou Z, Peng Y. Phascolarctobacterium faecium abundant colonization in human gastrointestinal tract. Experimental and Therapeutic Medicine. 2017;14(4):3122-3126. https://doi.org/10.3892/etm.2017.4878
- Du X, Liu J, Xue Y, Kong X, Lv C, Li Z, Huang Y, Wang B. Alteration of gut microbial profile in patients with diabetic nephropathy. Endocrine. 2021;73(1):71-84. https://doi.org/10.1007/s12020-021-02721-1
- Sun Y, Nie Q, Zhang S, He H, Zuo S, Chen C, Yang J, Chen H, Hu J, Li S, Cheng J, Zhang B, Zheng Z, Pan S, Huang P, Lian L, Nie S. Parabacteroides distasonis ameliorates insulin resistance via activation of intestinal GPR109a. Nature Communications. 2023;14(1):7740. https://doi.org/10.1038/s41467-023-43622-3
- Li H, Li C. Causal relationship between gut microbiota and type 2 diabetes: a two-sample Mendelian randomization study. Frontiers in Microbiology. 2023;14:1184734. https://doi.org/10.3389/fmicb.2023.1184734
- Freitas RGBON, Vasques ACJ, Fernandes GDR, Ribeiro FB, Solar I, Barbosa MG, Pititto BA, Geloneze B, Ferreira SRG. Associations of Blautia genus with early-life events and later phenotype in the NutriHS. Frontiers in Cellular and Infection Microbiology. 2022;12:838750. https://doi.org/10.3389/fcimb.2022.838750
- Waters JL, Ley RE. The human gut bacteria Christensenellaceae are widespread, heritable, and associated with health. BMC Biology. 2019;17(1):83. https://doi.org/10.1186/s12915-019-0699-4
- Jayanama K, Phuphuakrat A, Pongchaikul P, Prombutara P, Nimitphong H, Reutrakul S, Sungkanuparph S. Association between gut microbiota and prediabetes in people living with HIV. Current Research in Microbial Sciences. 2022;3:100143. https://doi.org/10.1016/j.crmicr.2022.100143
- Benítez-Guerrero T, Vélez-Ixta JM, Juárez-Castelán CJ, Corona-Cervantes K, Piña-Escobedo A, Martínez-Corona H, De Sales-Millán A, Cruz-Narváez Y, Gómez-Cruz CY, Ramírez-Lozada T, Acosta-Altamirano G, Sierra-Martínez M, Zárate-Segura PB, García-Mena J. Gut microbiota associated with gestational health conditions in a sample of Mexican women. Nutrients. 2022;14(22):4818. https://doi.org/10.3390/nu14224818
- Zhao JD, Li Y, Sun M, Yu CJ, Li JY, Wang SH, Yang D, Guo CL, Du X, Zhang WJ, Cheng RD, Diao XC, Fang ZH. Effect of berberine on hyperglycaemia and gut microbiota composition in type 2 diabetic Goto-Kakizaki rats. World Journal of Gastroenterology. 2021;27(8):708-724. https://doi.org/10.3748/wjg.v27.i8.708
- Kovatcheva-Datchary P, Nilsson A, Akrami R, Lee YS, De Vadder F, Arora T, Hallen A, Martens E, Björck I, Bäckhed F. Dietary fiber-induced improvement in glucose metabolism is associated with increased abundance of Prevotella. Cell Metabolism. 2015;22(6):971-982. https://doi.org/10.1016/j.cmet.2015.10.001
- Gaike AH, Paul D, Bhute S, Dhotre DP, Pande P, Upadhyaya S, Reddy Y, Sampath R, Ghosh D, Chandraprabha D, Acharya J, Banerjee G, Sinkar VP, Ghaskadbi SS, Shouche YS. The gut microbial diversity of newly diagnosed diabetics but not of prediabetics is significantly different from that of healthy nondiabetics. mSystems. 2020;5(2):e00578-19. https://doi.org/10.1128/mSystems.00578-19
- Deng K, Shuai M, Zhang Z, Jiang Z, Fu Y, Shen L, Zheng JS, Chen YM. Temporal relationship among adiposity, gut microbiota, and insulin resistance in a longitudinal human cohort. BMC Medicine. 2022;20(1):171. https://doi.org/10.1186/s12916-022-02376-3
- Siptroth J, Moskalenko O, Krumbiegel C, Ackermann J, Koch I, Pospisil H. Variation of butyrate production in the gut microbiome in type 2 diabetes patients. International Microbiology. 2023;26(3):601-610. https://doi.org/10.1007/s10123-023-00324-6
- Xu Z, Jiang W, Huang W, Lin Y, Chan FKL, Ng SC. Gut microbiota in patients with obesity and metabolic disorders: a systematic review. Genes and Nutrition. 2022;17(1):2. https://doi.org/10.1186/s12263-021-00703-6
- Syromyatnikov M, Nesterova E, Gladkikh M, Smirnova Y, Gryaznova M, Popov V. Characteristics of the gut bacterial composition in people of different nationalities and religions. Microorganisms. 2022;10(9):1866. https://doi.org/10.3390/microorganisms10091866
- Dekaboruah E, Suryavanshi MV, Chettri D, Verma AK. Human microbiome: an academic update on human body site specific surveillance and its possible role. Archives of Microbiology. 2020;202(8):2147-2167. https://doi.org/10.1007/s00203-020-01931-x
- Leite AZ, Rodrigues NC, Gonzaga MI, Paiolo JCC, de Souza CA, Stefanutto NAV, Omori WP, Pinheiro DG, Brisotti JL, Matheucci Junior E, Mariano VS, de Oliveira GLV. Detection of increased plasma interleukin-6 levels and prevalence of Prevotella copri and Bacteroides vulgatus in the feces of type 2 diabetes patients. Frontiers in Immunology. 2017;8:1107. https://doi.org/10.3389/fimmu.2017.01107
- Кайбышева В.О., Жарова М.Е., Филимендикова К.Ю., Никонов Е.Л. Микробиом человека: возрастные изменения и функции. Доказательная гастроэнтерология. 2020;9(2):42-55. https://doi.org/10.17116/dokgastro2020902142


Рекомендуем статьи по данной теме:
Проблемы организации диспансерного наблюдения пациентов с сахарным диабетом 2 типа.Профилактическая медицина. 2026;29(7):12-16
Влияние особенностей питания на метаболизм кишечной микробиоты у пациентов с сахарным диабетом 2-го типа.Доказательная гастроэнтерология. 2026;15(2):23-34
Особенности кишечной микробиоты у пациентки с колоректальным раком.Профилактическая медицина. 2026;29(5):80-84
Кортексин в комплексной терапии неврологических осложнений сахарного диабета 2 типа. (Результаты многоцентрового рандомизированного клинического исследования ДИАКОРТ).Журнал неврологии и психиатрии им. С.С. Корсакова. 2026;126(4):101-112
Коморбидность у пациентов с обструктивным апноэ сна. Часть 2. Наиболее клинически значимые варианты коморбидных взаимодействий.Профилактическая медицина. 2026;29(4):96-102
Эффективность применения телемедицинского мониторинга для снижения уровня гликированного гемоглобина у пациентов с сахарным диабетом: клинические и экономические аспекты.Профилактическая медицина. 2026;29(3):116-121
Клинико-экономическая оценка применения дистанционного мониторинга гликемии у пациентов с сахарным диабетом в Российской Федерации.Медицинские технологии. Оценка и выбор. 2026;48(1):92-102
Связь между кишечной микробиотой и патогенезом псориаза.Клиническая дерматология и венерология. 2026;25(1):15-22
Питание как фактор риска нарушений углеводного обмена в этнических группах населения России: татар, башкир, якутов и чеченцев. Пилотное исследование.Профилактическая медицина. 2026;29(2):63-70
Кишечная экосистема: новый взгляд на механизмы гиперурикемии.Профилактическая медицина. 2026;29(1):123-129