Адъюванты для вакцин против ветряной оспы и опоясывающего герпеса
Журнал: Адаптивная медицинская иммунология и вопросы общественного здоровья. 2026;2(2-3):5-15.
DOI: 10.17116/immunology2026202-315
Прочитано: 181 раз
Резюме
Разработка системы адъювантов для состава профилактической вакцины против вируса ветряной оспы (ВВО) и опоясывающего герпеса (ОГ) остается актуальной задачей, поскольку на сегодняшний день зарегистрирована только одна рекомбинантная вакцина с адъювантом, состав которого ограничивает ее применение. Адъювант для вакцины против ВВО должен соответствовать ряду критериев: стимулировать не только адаптивный иммунный ответ, но и клеточный и врожденный, поскольку вирус остается латентным в клетке на протяжении всей жизни человека, должен быть безопасным и нереактогенным. Поэтому на этапе разработки в протокол исследования наряду с изучением стимулирования T-клеточного иммунитета следует включить испытания, направленные на изучение экспрессии генов и активацию синтеза маркеров врожденного иммунного ответа: провоспалительных цитокинов ИЛ-6, ИЛ-12, ИЛ-18, ФНО, ИФН-α и др. Стандарты исследований противовирусных вакцин предлагается усовершенствовать и расширить за счет включения, помимо оценки антительного ответа, определения параметров клеточного и врожденного. В ФГБНУ «НИИВС им. И.И. Мечникова» ведется работа по созданию рекомбинантной вакцины против ОГ, важным этапом разработки которой является проверка экспрессии генов врожденного иммунитета в ответ на введение адъюванта-агониста TLR9.
Ключевые слова
- вакцина
- ветряная оспа
- опоясывающий герпес
- клеточный иммунитет
- врожденный иммунитет
- адъюванты
- Toll-подобный рецептор
Дата поступления: 10.03.2026
Дата принятия в печать: 25.06.2026
Дата публикации: 26.10.2026
Введение
Профилактика заболеваний, ассоциированных с вирусом ветряной оспы
Вирус ветряной оспы (ВВО) — это нейротропный альфа-герпесвирус человека, который после первичного инфицирования остается в латентной форме в тропных тканях и при определенных условиях реактивируется. Первичное заражение приводит к ветряной оспе (ВО), которая преимущественно встречается у детей и характеризуется генерализованной, везикулярной, зудящей сыпью [1]. Защитные механизмы организма активируются при первичном инфицировании, инициируя гуморальное звено иммунной системы [2]. Уровень антител к ВВО остается высоким в течение всей жизни после заражения, однако для формирования стойкого иммунитета к ВВО и препятствия его реактивации необходимо подключение клеточного звена [3]. С возрастом и при иммуносупрессивных состояниях защитные реакции, обусловленные клеточными иммунными реакциями, ослабевают, местные иммунные реакции становятся недостаточными для предотвращения распространения инфекции, латентный вирус реактивируется, что приводит к развитию опоясывающего герпеса (ОГ) [4]. Активно размножаясь в сенсорных ганглиях, далее распространяясь на кожу и инфицируя клетки эпидермиса кожи, ВВО вызывает характерную болезненную сыпь в местах, иннервируемых связанными ганглиями, что приводит к постгерпетической невралгии (ПГН). Другим распространенным осложнением ОГ является офтальмогерпес [5]. Данные статистических исследований показали, что в 2020 г. в мире было зарегистрировано 14,9 млн случаев ОГ у лиц в возрасте ≥50 лет. По прогнозу, в 2025 г. число заболевших должно увеличиться до 17,0 млн, а к 2030 г. — до 19,1 млн из-за глобальной тенденции к старению населения [6].
Поскольку противовирусные препараты и обезболивающие могут облегчить лишь некоторые из сопутствующих симптомов, вакцинация является основным методом борьбы с инфекцией, вызванной ВВО. Для профилактики ВВО успешно применяются живые аттенуированные вакцины, которые имитируют иммунный ответ на попадание патогена в организм человека. Восстановление клеточного иммунного ответа с помощью вакцинации применяется не только для профилактики инфицирования ВО, но и для профилактики возникновения ОГ [7]. Разработка состава высокотехнологичного препарата требует усовершенствования не только формулы активного вещества — высокоиммуногенного антигена, но и адъюванта или системы доставки, которые позволяют увеличить эффективность и безопасность вакцины. На этапе разработки важно всесторонне изучать потенциальный препарат, учитывая особенности механизма действия его компонентов и влияние на иммунный ответ с целью прогнозирования синергии врожденного и адаптивного иммунного ответов на антиген и адъювант. Оптимальное наименьшее количество активных и вспомогательных веществ с наибольшим потенциалом эффективности позволит снизить нежелательные реакции при введении или нежелательные явления (НЯ) в целом. Поэтому протоколы исследований необходимо расширять за счет добавления изучения параметров не только адаптивного иммунного ответа, но и врожденного.
Цель исследования — анализ опыта разработок адъювантов вакцин для профилактики ВО и ОГ. Оценка исследований адъювантов и вакцин на параметры врожденного и клеточного иммунитета на этапе разработки и проведения регистрационных исследований препаратов, используемых при профилактике инфекционных заболеваний.
Состав вакцин
Как правило, вакцины состоят из трех основных компонентов: эффективного антигена, адъюванта и системы доставки компонентов к антигенпрезентирующим клеткам (АПК), внутриклеточным органеллам или в места локализации, такие как лимфатические узлы (ЛУ) и слизистые оболочки. К адъювантам относятся иммуномодулирующие вещества, которые добавляют в состав препарата для увеличения иммуногенных свойств, ускорения формирования иммунного ответа, увеличения продолжительности защиты, уменьшения количества используемого антигена. Адъюванты можно комбинировать в составе препаратов для повышения их активности. Зачастую сам адъювант выступает в роли носителя [8]. Выделяют три типа системы доставки: неорганические соли, водно-масляные эмульсии и системы доставки антигена в виде микрочастиц. Важность носителей неоспорима, поскольку они могут усилить иммунный эффект адъювантов, обеспечить совместную доставку антигена и адъюванта или продлить активность антигена за счет свойств носителя, что особенно важно для рекомбинантных вакцин [9].
Технологии производства составляющих препарата отработаны и зависят от свойств компонентов. Одним из вариантов является независимый синтез адъюванта и иммуногена с последующей адсорбцией молекул иммуногена на адъюванте (либо путем смешивания непосредственно перед применением, либо предварительно приготовленного). Другой вариант — инкапсуляция иммуногена и адъюванта в полимер для обеспечения одновременной доставки компонентов в одни и те же АПК. Существует альтернативный подход, который заключается в использовании самого инкапсулирующего материала в качестве адъюванта. Таким примером могут служить мРНК-вакцины, где ионизируемые липиды, обладающие врожденной иммуностимулирующей активностью, выступают в качестве инкапсулирующего компонента — липидных наночастиц. Ведутся попытки разработать химерный адъювант, объединяющий адъювант с самим иммуногеном, для синергии иммуностимулирующего эффекта обоих компонентов [10—12].
В настоящее время, помимо алюминиевых адъювантов, FDA одобрены для использования в вакцинах против различных инфекций MF59, AS03, AS04, CpG-ODN, AS01B и Matrix-M [13].
Таким образом, создание и разработка эффективных вакцин с новыми адъювантами и носителями, обладающими как иммуностимулирующими, так и направляющими свойствами, являются основой и будущим успешных вакцин.
Адъюванты в зарегистрированных вакцинах для профилактики заболеваний, ассоциированных с вирусом ветряной оспы
Для профилактики ВО зарегистрировано семь живых аттенуированных вакцин различных производителей, для профилактики ОГ — две живые и одна рекомбинантная вакцина. Живые аттенуированные вакцины не содержат в своем составе адъюванта и систем доставки, выпускаются во флаконах, содержащих лиофилизат и растворитель в виде прозрачной бесцветной жидкости, которые смешиваются непосредственно перед введением. К таким вакцинам относятся: ВАРИВАКС, «Мерк Шарп и Доум Б.В.», Нидерланды; Варилрикс, «ГлаксоСмитКляйн Байолоджикалз с.а.», Бельгия; SKYVaricella, SK Bioscience Co., Ltd., Южная Корея; BARYCELA, GC Biopharma, Южная Корея; Varicella Vaccine, Live, Sinovac (Dalian) Vaccine Technology Co., Ltd., Китай; SKYZoster, SK bioscience, Южная Корея. Рекомбинантная вакцина против ОГ (Shingrix, «ГлаксоСмитКляйн Байолоджикалз с.а.», Бельгия) содержит рекомбинантный гликопротеин E ВВО (gE) в сочетании с адъювантом AS01B, который включает QS-21, монофосфорил липид A (MPL) в липосоме. Агонист Toll-подобного рецептора 4 (TLR4) монофосфорил-липид A — производное липополисахарида из грамотрицательных бактерий. Активация TLR4 клеток запускает TRIF- и MyD88-зависимые сигнальные пути, что приводит к запуску провоспалительного ответа и продукции фактора некроза опухоли (ФНО), интерлейкина (ИЛ)-6 мононуклеарами периферической крови. Кроме того, агонисты TLR4 увеличивают экспрессию CD80, CD86 и CD40 дендритных клеток (ДК), активируют пролиферацию T-хелперов (Тх) и цитотоксических T-лимфоцитов (ЦТЛ, CTL) [14—16].
QS-21 представляет собой сапониновую фракцию, экстрагированную из коры дерева Quillaja saponaria Molina. QS-21 активно накапливается в макрофагах, вызывает высвобождение белка группы высокой подвижности B1 (HMGB1) и активацию каспазы-1, что индуцирует образование инфламмасомы NLRP3 в ДК и макрофагах, приводит к высвобождению ИЛ-1β и ИЛ-18. Зрелые ДК активируют антиген (АГ)-специфические T-клетки через MyD88-путь [17].
В основных исследованиях вакцина Shingrix продемонстрировала значительно более высокую эффективность (91% эффективности по антительному ответу) по сравнению с живой аттенуированной вакциной Zostavax (51% эффективности по антительному ответу), что подтверждает: для обеспечения защиты достаточно иммунитета только к gE. Shingrix вызывает стойкий иммунный ответ CD4+ T-клеток на ВВО, однако в крупномасштабном когортном исследовании было продемонстрировано, что специфический клеточный иммунитет к gE является наиболее явным коррелятом защиты [18].
Несмотря на высокую эффективность препарата Shingrix, возникают опасения по поводу его безопасности из-за значительного количества НЯ, которые, вероятно, связаны с реактогенностью адъюванта AS01B [19]. Объединенный анализ данных о безопасности, полученных в ходе двух основных исследований, показал, что частота НЯ 3-й степени составила 3,8% по сравнению с 0,2% в группе плацебо, при этом наиболее частой была боль в месте инъекции. Кроме того, производство, а также устойчивость в процессе использования QS-21 натурального экстракта вызывают затруднения. В первую очередь это связано с прогнозируемым уменьшением запасов основного компонента адъюванта, который используется в различных лицензированных вакцинах (Mosquirix Nuvaxovid, Arexvy и R21/Matrix-M), а ввиду того, что QS21 — это смесь полисахаридов, синтез его невозможен. Ограниченное распространение Q. saponaria по всему миру и строгий контроль качества в процессе экстракции QS21 сделали вакцину Shingrix дорогой. Как и живые аттенуированные вакцины, Shingrix выпускается в виде отдельных флаконов с лиофилизированным gE и жидкими липосомальным адъювантом, чтобы не нарушить физико-химические характеристики AS01B в процессе сушки и регидратации [20].
Таким образом, существует необходимость в разработке эффективной вакцины против ОГ, которая будет безопасной и доступной за счет усовершенствования системы адъювантов или доставки.
Адъюванты в вакцинах для профилактики заболеваний, ассоциированных с вирусом ветряной оспы, в разработке
Поскольку до сих пор адъюванты на основе солей алюминия (квасцы) остаются наиболее используемыми и являются стандартом, все новые адъюванты сравнивают с ними. Квасцы используются для повышения эффективности вакцин уже более 90 лет. Классическим представлением механизма их действия является активация реакции Тх2, которая опосредует дифференцировку B-клеток, секретирующих изотипы антител, ассоциированных с Тх2-клетками. S. Eisenbarth и соавт. было показано, что адъювант на основе квасцов активирует внутриклеточную систему врожденного иммунного ответа через активацию инфламмасомы NLRP3, способен усиливать врожденный иммунитет через активацию NOD-рецепторов (Nucleotide-binding oligomerization domain receptor), активирует каспазу-1, которая индуцирует активацию ИЛ-1β и ИЛ-18 и/или ИЛ-33, что может вызывать необходимые сигналы для активации адаптивной иммунной системы. Таким образом, алюминиевый адъювант усиливает интерферон (ИФН)-опосредованный сигналинг, процессинг и презентацию АГ ГКГС I (главный комплекс гистосовместимости I типа), оказывая усиливающее действие на дифференцировку и созревание моноцитов в АПК [21].
T. Chen и соавт. экспериментальным путем доказали иммуногенность усеченного gE (aa 31—358) — tgE (truncated gE, усеченный гликопротеин E), который был получен с помощью системы экспрессии E. coli. Было обнаружено, что tgE с алюминиевым адъювантом обладает большей иммуногенностью по сравнению с живой аттенуированной вакциной (штамм Oka). При использовании в качестве адъюванта AS01B двухдозовая иммунизация tgE показала сопоставимую или более высокую эффективность в отношении выработки антител и клеточного иммунитета по сравнению с вакциной Shingrix в той же дозировке, особенно в отношении доли CD4+ T-клеток, экспрессирующих ИФН-γ [22].
Потенциальными мишенями для адъювантов являются рецепторы распознавания образов как ключевые факторы врожденной иммунной системы, взаимодействующие с молекулярными структурами патогенов. К ним относятся TLR, распознающие липиды, липопротеины, нуклеиновые кислоты и белки; NOD-подобные рецепторы, реагирующие на множество лигандов, таких как виды пептидогликанов, флагеллин, токсины и АТФ; геликазы (RIG-I-подобные рецепторы, RLR), запускаемые цитоплазматической РНК; рецепторы лектинов C-типа (CLR), распознающие углеводы. Они передают сигналы через MyD88, TRIF, RIP2, CARD9 и IPS-1, которые частично определяют результат взаимодействия рецептора с лигандом. Эти сигнальные пути активируют две ключевые программы транскрипции с участием факторов транскрипции NF-κB, IRF-3 и IRF-7, что приводит к индукции генов, кодирующих цитокины, хемокины и костимулирующие молекулы, которые играют ключевую роль в запуске, усилении и поляризации иммунных реакций (см. рисунок) [23].
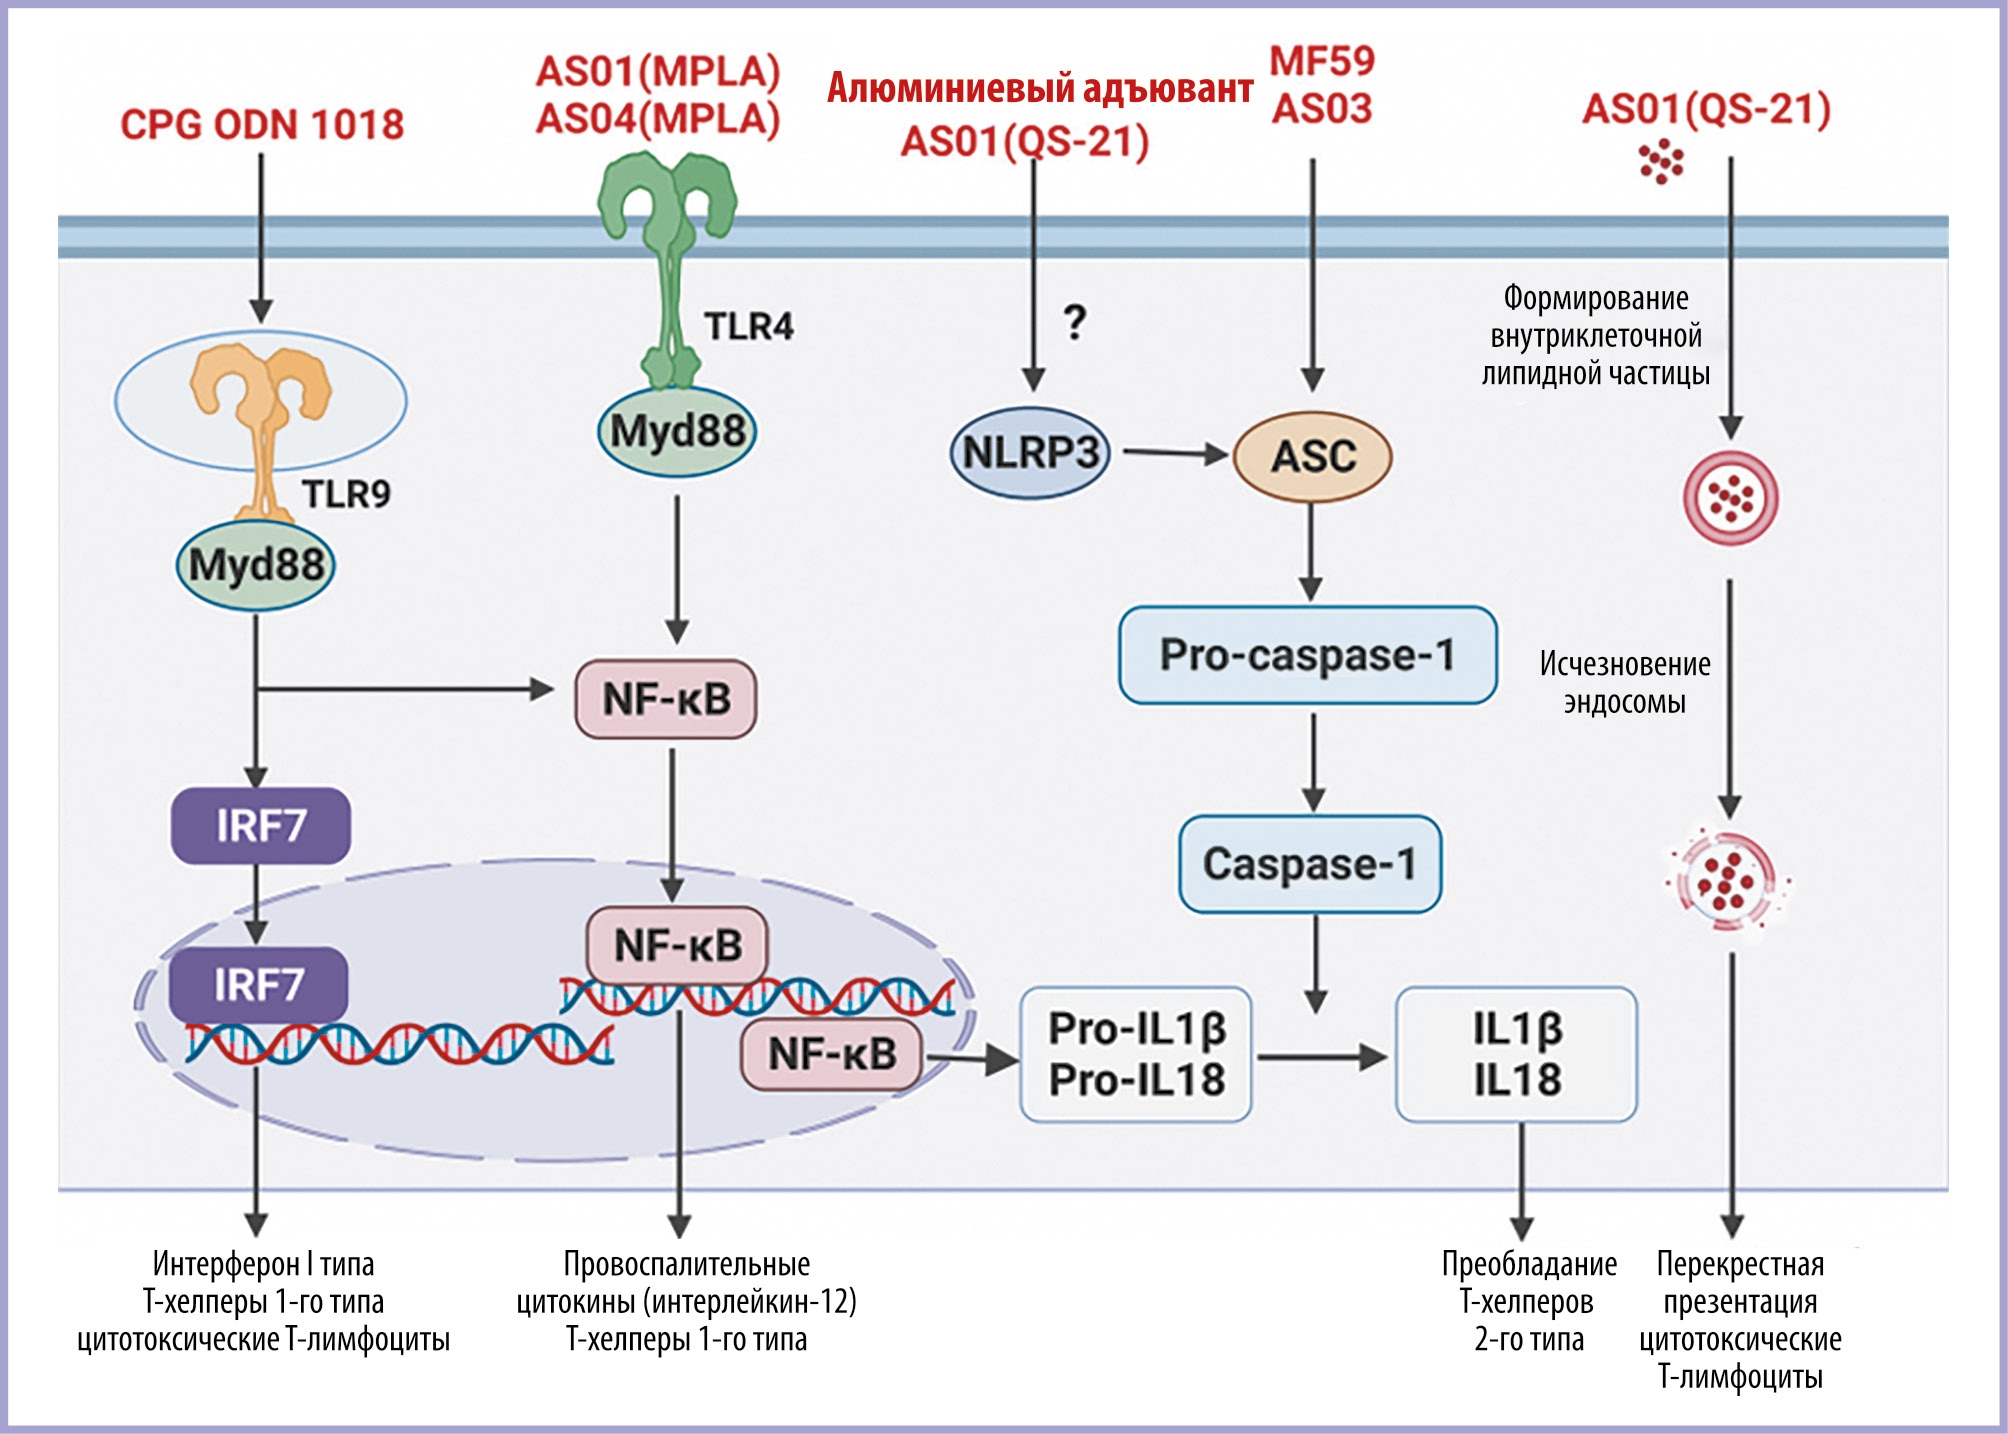
Каскад иммунологических реакций при введении разных видов адъювантов.
Signal Transduct Target Ther. 2023 Jul 19;8:283. https://doi.org/10.1038/s41392-023-01557-7
В поисках подходящего адъюванта для разработки противовирусных вакцин были испытаны синтетические олигонуклеотиды (synthetic CpG-oligodeoxynucleotides, CpG-ODN), содержащие неметилированные цитозин-фосфат-гуаниновые мотивы (CpG-мотивы), которые активируют врожденную иммунную систему, связываясь с клетками, экспрессирующими TLR9, локализованные преимущественно в эндосомах плазмоцитоидных ДК (пДК) и B-клеток и отвечающие за распознавание неметилированных CpG-мотивов ДНК. Агонисты TLR9 активируют сигнальные молекулы MyD88, IRAK и TRAF-6, индуцируют экспрессию костимулирующих молекул CD40, CD80, CD86 и синтез провоспалительных цитокинов ИЛ-6, ИЛ-12, ИЛ-18 и ФНО, а также ИФН-α. Принято выделять типы CpG-ODN на основании их механизма действия: A-тип стимулирует выработку ИФН-α пДК; B-тип — пролиферацию и синтез ИЛ-6 и IgM B-клетками, а также ИЛ-6 и ФНО ДК; для C-типа характерна активность обоих типов. Агонисты TLR9 активируют ДК, натуральные киллеры и T-клетки, что приводит к продукции АТ B-клетками, увеличению количества B-клеток в герминативном центре ЛУ [24, 25]. Синтетические олигонуклеотиды широко исследуются как адъюванты в составе как профилактических вакцин, так и терапевтических. Результаты исследований показывают, что CpG-олигонуклеотиды усиливают гуморальный и клеточный иммунный ответ, а также ускоряют выработку специфических Ig и способствуют формированию более высоких и устойчивых титров антител при использовании в сочетании с белковыми вакцинами [26].
Используемые в настоящее время CpG-адъюванты усовершенствованы и защищены от деградации за счет модификации основной цепи, в то время как природные CpG-олигонуклеотиды легко разрушаются нуклеазами как in vivo, так и in vitro. Одним из вариантов модификации может быть замещение фосфодиэфирных связей фосфоротиоатными. Однако было показано, что фосфоротиоатный остов может вызывать нежелательные побочные эффекты из-за неспецифического связывания с различными белками. Были разработаны эффективные и безопасные синтетические CpG-ODN, состоящие из фосфодиэфирной основы — ODN 2006 (PD-ODN 2006-2006 и PD-ODN 2006-2006-2006), которые могут быть использованы в низких концентрациях [27].
Другой подход разработки рецептуры адъюванта основан на включении олигонуклеотидов и белкового антигена с pH-чувствительными липосомами листериолизина O, который позволяет одновременно получить адъювант, направленный на активацию врожденной иммунной системы, а также доставить антиген в цитозоль АПК для стимуляции клеточного иммунитета. При исследовании данного адъюванта были отмечены мощный ответ цитотоксических T-лимфоцитов, CD4+ и CD8+ T-клеток, секретирующих ИФН-γ, и выработка антител Тх1 [28].
Адъювант на основе синтетических олигонуклеотидов, а именно 24-мерный CpG-олигодезоксинуклеотид класса B (CPG 7909), использовался в экспериментальной вакцине против сибирской язвы. Также CPG 7909 был протестирован на предмет безопасности, переносимости и способности усиливать иммуногенность коммерческой трехвалентной инактивированной сплит-вакцины против гриппа (Fluarix). Установлено, что добавление CPG 7909 к Fluarix позволяет использовать меньшие дозы антигена без снижения иммуногенности [29, 30].
Сочетание вакцины против японского энцефалита pJME-LC3 с адъювантом CpG-ODN 1826 и имиквимодом усиливает врожденный иммунный ответ, способствуя созреванию и активации АПК на ранней стадии иммунного ответа. Кроме того, синергический эффект адъювантов играет регулирующую и оптимизирующую роль в последующих антигеноспецифических иммунных реакциях, обеспечивая эффективный клеточный и гуморальный иммунитет и длительную иммунную защиту [31].
В экспериментальной вакцине против SARS-CoV-2 в состав адъюванта добавляли квасцы к CpG и установили, что оптимальным соотношением состава по массе является 1:2 или 1:1 соответственно [32].
В ФГБНУ «НИИВС им. И.И. Мечникова» разрабатывается вакцина для профилактики заболеваний, ассоциированных с ВВО, в качестве адъюванта испытываются составы, содержащие CpG и соли алюминия в различных соотношениях [33].
Китайские ученые разработали вакцину, содержащую слитый белок гликопротеина E и I (gEgI), соединенный линкером, и композитный адъювант (XUA09C), содержащий эмульсию в сочетании с CpG 1018. Вакцина gEgI с адъювантом XUA09C вызывает сопоставимый ответ антител и значительно более сильный ответ T-клеток по сравнению с Shingrix [34].
Y. Wang и соавт. разработали серию наночастиц на основе системы доставки (lactic-co-glycolic acid, PLGA), включающих антиген ВВО гликопротеин E (VZV-gE), polyinosinic-polycytidylic acid (Poly I:C) и фосфодиэфир CpG-ODN. Результаты исследований показали, что наночастицы на основе PLGA вместе с иммуностимуляторами являются мощными индукторами выработки не только gE-специфичных CD4+ T-клеток, но и gE-специфичных CD8+ T-клеток и могут стать безопасным и экономически выгодным в производстве вариантом вакцины против ВО и ОГ [35].
S. Lee и соавт. разработали и исследовали вакцину против ВВО на основе одноцепочечной РНК в сочетании с усеченной формой антигена ВВО gE с удаленным трансмембранным доменом. Адъювант на основе одноцепочечной РНК повышает иммуногенность антигена gE и усиливает выработку антител к gE и CD4+ T-клеток [36].
Платформа на основе наночастиц для доставки рекомбинантного антигена gE, содержащегося в биоаналоговом адъюванте MF59, была использована при разработке серии экспериментальных вакцин Y. Li и соавт. У мышей и макак-резусов кандидат gEM (конъюгированные частицы гликопротеина E и носителя NPM) вызывал более сильный клеточно-опосредованный иммунитет, чем Shingrix [37].
Корейские ученые разработали вакцину против ОГ CVI-VZV-001, содержащую белок gE и адъювант на основе липосом Lipo-pam, который состоит из двух агонистов TLR2-TLR3. CVI-VZV-001 вызывает клеточный и гуморальный иммунный ответ, специфичный для gE ВВО, сопоставимый с ответом на Shingrix у животных [38].
Система адъювантов на основе ДНК BCG CpG 02 (BC02), содержащая соль алюминия, была протестирована с экспериментальной вакциной против ОГ —gE+BC02. В результате была показана значительная стимуляция секреции цитокинов врожденного иммунитета ФНО-α, MCP-1, ИЛ-6 и GM-CSF, а также повышение уровня костимулирующих молекул CD40, CD80 и I-A/I-E в клетках RAW264.7, кроме того, была показана активация формирования макрофагов M2, что свидетельствует о том, что составной адъювант BC02 позволяет стимулировать врожденный и адаптивный иммунитет к специфическому белку gE ВВО [39].
S. Wui и соавт. разработали новую систему адъювантов CIA09A, состоящую из катионных липосом, де-О-ацилированного липоолигосахарида (агониста TLR4) и фракции сапонинов Quillaja QS-21. У мышей, иммунизированных вакциной против ОГ с gE и CIA09A, значительно увеличилось количество gE-специфичных полифункциональных CD4+ T-клеток, экспрессирующих ИФН-γ, ФНО-α и ИЛ-2 [40].
Подход использования цитокинов в качестве адъювантов был применен в работах A. Kim и соавт. Так, были разработаны ДНК-вакцины, кодирующие белки ВВО и цитокиновые адъюванты, такие как ИЛ-7 и ИЛ-33. В качестве вакцинных антигенов использовали gE, immediate early (IE) 63 и IE62. Было показано, что антиген в комбинации с цитокиновым адъювантом стимулирует сильный T-клеточный ответ (см. таблицу) [41].
Адъюванты для вакцин против ВВО, находящиеся в исследованиях
Вакцина | Состав адъюванта | Механизм действия | Ссылка на описание исследования/регистрацию |
Вакцина рекомбинантная gE, адъювант монокомпонентный | |||
gEM | MF59 (на основе сквалена в виде эмульсии «масло в воде») | Активирует макрофаги, моноциты и дифференцировку ДК, которые в ответ продуцируют спектр провоспалительных цитокинов и хемокинов, таких как CCL4 (Chemokine C motif ligands), CCL2, CCL5, CXCL8, определяющих миграцию АПК в ЛУ | Y. Li, 2024 [37] |
Shingrix | QS21 (смесь двух изомерных сапонинов) | Инфламмасома NLRP3 Разрушение клеточных мембран, включая дестабилизацию эндосом-лизосом, что облегчает транслокацию антигена в цитозоль для протеасомно-независимой перекрестной презентации ГКГС I для индукции клеточного иммунного ответа | https://doi.org/10.1016/ j.phymed.2019.152905 https://doi.org/10.3390/ vaccines9030222 |
tgE/Al-001 | Al-001 (соли алюминия) с усеченным gE (tgE) | Инфламмасома NLRP3 Способствуют презентации АГ в комплексе с молекулами ГКГС на АПК, тем самым участвуя в активации адаптивного иммунитета | T. Chen, 2023 [22] |
Shingrix | MPL: монофосфорил липид A — производное липополисахарида | TLR4, стимулирует транскрипцию NF-κB и выработку цитокинов, а также активирует АПК, повышает продукцию хемокинов, при этом такие хемокины, как CCL2 и CCL3, способствуют миграции в зону инъекции моноцитов, макрофагов, ДК | N. Garcon, 2007 [10] |
GLA-SA (глюкопиранозил-липидный синтетический) | TLR4 | N. Garcon, 2007 [10] | |
SLA-SA (синтетический лиганд TLR4) | Синтетический лиганд TLR4, оптимизированный для связывания с компонентом MD2 человека врожденного сигнального комплекса MD2/TLR4 | ||
CpG ODN | TLR9 — стимулируют секрецию интерферонов типа I (например, ИФН-α), а также ИЛ-6, ФНО-α, GM-CSF, усиливают миграцию пДК в ЛУ и индуцируют экспрессию костимулирующих молекул (CD40, CD54, CD80, CD86), способствуют созреванию миелоидных ДК, индуцируют CD8+ Tregs, экспрессирующие иммуноингибирующие молекулы (LAG3, CTLA4) | https://doi.org/10.1080/ 10717544.2025.2517137 | |
CrPV IGR IRES, кодирующий ген VZV gE | ssRNA (одноцепочечная РНК) | Одноцепочечная РНК распознается TLR7 и/или TLR8, которые активно экспрессируются в АПК и стимулируют адаптивный иммунный ответ антигеноспецифичных T-клеток, сопровождающийся выработкой высокоаффинных антител | S. Lee, 2020 [36] |
Вакцина рекомбинантная gE, адъювант многокомпонентный | |||
Shingrix | AS01B (MPL+QS21 в липосоме) | TLR4, активирует белковый комплекс ACS-NLRP3 QS-21 и MPL действуют синергически, вызывая высокую частоту появления CD4+ T-клеток, специфичных для gE. В случае с антителами к gE наблюдался аддитивный, а не синергичный эффект | https://doi.org/10.1016/ j.phymed.2019 |
tgE/AS01B | AS01B с усеченным gE (tgE) | — | T. Chen, 2023 [22] |
gE + CpG + Poly I:C | CpG ODN BW006 (класс B) и 2395 (класс C), Низкомолекулярный поли I:C | TLR9+ катионные липиды обладают большим потенциалом, чем нейтральные липиды для активации gE-специфического клеточно-опосредованного иммунитета, стимулирование выработки ИФН-γ и ИЛ-2 | Y. Wang, 2021 [35] |
Адъюванты для вакцин против ВВО, находящиеся в исследованиях (окончание)
Вакцина | Состав адъюванта | Механизм действия | Ссылка на описание исследования/регистрацию |
Вакцина рекомбинантная gE, адъювант многокомпонентный | |||
Рекомбинантная CVI-VZV-001 | Lipo-pam (1,2-диолеоилокси-3-триметиламмоний пропан хлорид (DOTAP) и 1,2-дипальмитоил-sn-глицеро-3-фосфохолин (DPPC), образуют бислой липосом, в который встроен агонист TLR2, агонист TLR3 прикреплен к поверхности липосом) | Lipo-pam способствует взаимодействию с мембраной иммунных клеток, что приводит к активации АПК и индукции стойких антигеноспецифических гуморальных и клеточных иммунных реакций | S. Jeong, 2024 [38] |
gE+BC02 | BC02 (состоит из биологического адъюванта BCG CpG DNA с адъювантом неорганической соли Al(OH) 3) | BCG CpG DNA активирует врожденный иммунный ответ через сигнальные пути NF-κB и MAPK. Иммуностимулирующий эффект алюминиевого адъюванта заключается в стимулировании фагоцитоза АПК, в том числе в стимулировании фагоцитоза и процессинга антигена ДК и макрофагами | J. Li, 2022 [39] |
gE+CIA09A | CIA09A (состоит из катионных липосом, агониста TLR4- ацилированного липоолигосахарида и фракции сапонина Quillaja QS-21) | TLR4+QS21 | S. Wui, 2019 [40] |
Вакцина рекомбинантная gE, адъювант-платформенное решение доставки | |||
gEM | Платформа на основе наночастиц | Активирует макрофаги, моноциты и дифференцировку ДК, которые в ответ продуцируют спектр провоспалительных цитокинов и хемокинов, таких как CCL4, CCL2, CCL5, CXCL8, определяющих миграцию АПК в ЛУ | Y. Li, 2024 [37] |
gE+CpG+Poly I:C | Наночастицы на основе PLGA (lactic-co-glycolic acid, PLGA) | TLR9+ катионные липиды обладают большим потенциалом, чем нейтральные липиды, для активации gE-специфического клеточно-опосредованного иммунитета, стимулирование выработки ИФН-γ и ИЛ-2 | Y. Wang, 2021 [35] |
ДНК-вакцины | |||
gE, immediate early (IE) 63 и IE62 | Адъюванты цитокинов, такие как ИЛ-7 и ИЛ-33 | Стимулируют как NK-клетки, так и пролиферацию T-клеток | R. Kim, 2018 [41] |
РНК-вакцина | |||
мРНК-ЛНП | Липосома на основе ионизируемого липида NOF (NOF Corporation) | Индукция ИЛ-2 в дополнение к ИФН-γ | |
Вакцина рекомбинантная gEgI | |||
gEgI/XUA09C | MF59 в сочетании с CpG1018 (XUA09C) | TLR9, привлечение и транспортировка иммунных клеток и антигенов в лимфатические узлы в значительной степени за счет секреции хемокинов и хемотаксиса | S. Zhang, 2025 [34] |
Примечание. АПК — антигенпрезентирующие клетки; ЛУ — лимфатические узлы; ГКГС I — главный комплекс гистосовместимости I типа; АГ — антиген; ДК — дендритные клетки; TLR — Toll-подобные рецепторы; IL — интерлейкин; TNF-α — фактор некроза опухоли альфа; GM-CSF — гранулоцитарный макрофагальный колониестимулирующий фактор; пДК — плазмоцитоидные дендритные клетки; ИФН — интерферон.
Критерии исследований адъювантов и вакцин для профилактики заболеваний, ассоциированных с вирусом ветряной оспы
При создании вакцины оправдана концепция объединения подходов к оценке эффективности как адъюванта, так и самого антигена. При выборе адъюванта для вакцины против ВВО обоснован подход эффективного воздействия на все звенья иммунитета, в том числе на параметры врожденного иммунитета, поэтому на этапе планирования научной работы необходимо включить в протокол исследования оценку активации Toll-подобных рецепторов, цитокинового профиля, что поможет спрогнозировать дополнительную эффективность препарата, помимо этого, позволит уменьшить содержание антигена, сделать препарат безопаснее.
На сегодняшний день как в Российской Федерации, так и в мировой практике стандартным подходом исследования вакцин является включение в протокол параметров антительного и клеточного ответов. Так, параметры клеточного иммунного ответа на вакцину против ВО измерялись в исследованиях фазы I/II. Было установлено, что временная динамика появления T-клеток памяти совпадает с динамикой антительного ответа (появление в течение 2 нед; пик через 4—6 нед и значительное снижение через 12 мес). Положительные ответы наблюдались после вакцинации у 95—100% пациентов на 6-й неделе; у 90—100% — на 9—12-м месяце; у 88—95% — на 3—6-м году. Цитотоксические реакции, опосредованные как CD4+, так и CD8+ T-клетками, были направлены на специфические мишени, включая пять гликопротеинов ВВО и два белка немедленного раннего экспрессирования. Ответы сохранялись около 4 лет на уровнях, сопоставимых с теми, которые наблюдались после перенесенной ВО. У многих вакцинированных ответы T-клеток памяти увеличивались с течением времени, что указывает на экзогенное бустирование. Как и в случае с гуморальными реакциями, специфические для ВВО T-клеточные ответы после вакцинации сохранялись до 20 лет. Эти ответы были более выражены у детей, чем у взрослых. При исследовании рекомбинантной вакцины установлено, что у пациентов, получивших вакцину Shingrix, было примерно в 10 раз больше gE-специфичных CD4+ и CD8+ T-клеток, чем у реципиентов Zostavax. gE-специфичные Tx1 CD4+ T-клетки чаще, чем CD8+ T-клетки, используются в качестве надежных индикаторов потенциала вакцин против ОГ в экспериментах на животных и клинических испытаниях. Это обусловлено тем, что вскоре после иммунизации количество ДК ГКГС II увеличивается, и они более эффективно представляют антигены CD4+ T-клеткам, чем CD8+ T-клеткам. Во-вторых, в отличие от антигеноспецифичных CD4+ T-клеток, количество CD8+ T-клеток памяти очень быстро снижается после устранения инфицирующих патогенов или иммунизированных антигенов [35].
В Российской Федерации разработано «Руководство по доклиническим и клиническим исследованиям вакцин для профилактики ветряной оспы» ФГБУ НЦЭСМП Минздрава России (2024), в котором указано, что «при проведении доклинических исследований новых вакцин, созданных на основе хорошо охарактеризованных штаммов, следует ориентироваться преимущественно на общие рекомендации по исследованиям токсичности при однократном и многократном введении, оценке иммуногенности, протективной эффективности и фармакологической безопасности». Для клинических исследований следует проводить «сравнительную оценку иммуногенности, реактогенности и безопасности между исследуемой вакциной и препаратом сравнения». Оценка иммуногенности проводится методом ФАМА (флюоресцирующие антитела к гликопротеину ВВО). Рекомендованный уровень защитного титра составляет 1:64 и выше. При оценке сероконверсии методом ИФА защитный титр оценивается по приросту антител и должен быть увеличен в 4 раза и более1.
Поскольку вакцина против ВВО относится к противовирусным вакцинам, на этапе разработки необходимо проведение дополнительной оценки параметров клеточного и врожденного иммунитета, особенно для рекомбинантных вакцин. Выбор антигена и адъюванта должен быть обоснован с учетом механизмов действия как антигена, так и адъюванта. Протоколы, включающие оценку только гуморального иммунного ответа, не удовлетворяют современным требованиям к проведению испытаний вакцин, направленных на профилактику инфекционных заболеваний.
ЗАКЛЮЧЕНИЕ
Для профилактики заболеваний, вызванных ВВО, широко используются живые аттенуированные вакцины. Несмотря на успех их применения, проблемы, связанные с безопасностью, привели к разработке рекомбинантной вакцины против ОГ. Рекомбинантные вакцины без оптимизированной системы доставки и без адъювантов слабо стимулируют иммунную систему и индуцируют как ограниченный ответ антител, так и минимальный клеточный иммунитет, в частности ответы антигенспецифических цитотоксических T-лимфоцитов. Эффективные вакцины против вирусных инфекций должны стимулировать оба звена иммунной системы: гуморальный и клеточно-опосредованный. Повысить эффективность вакцинного препарата возможно за счет добавления молекулярных адъювантов, которые воздействуют на врожденный иммунный рецептор и обладают иммунопотенцирующими свойствами, регулирующими силу и тип иммунного ответа. Так, для вакцин против ВВО перспективным направлением является разработка адъювантов на основе агонистов TLR9, одноцепочечной РНК, возможен вариант использования цитокинов. Для достижения стойкого иммунного ответа часто необходимо выбрать подходящую систему доставки молекулярных адъювантов и антигенов, например в виде липосом. Представляется перспективным изучение возможности использования наночастиц и вирусоподобных частиц для доставки антигена ВВО с включением адъюванта с хорошим профилем безопасности и иммуногенности. Сохранение высокой иммуногенности при одновременном снижении потребности в сильнодействующих адъювантах должно стать приоритетной задачей при разработке вакцины против ОГ нового поколения, учитывая, что эффективность существующей на рынке вакцины Shingrix превышает 90%.
Выбор адъюванта для состава противовирусных вакцин определяется прежде всего возможностью его воздействия на клеточный иммунитет, что важно изучать на этапе разработки. Также важны дополнительные знания о влиянии на параметры врожденного иммунитета. Например, при исследовании вакцины на основе CpG-адъюванта — экспрессию TLR9. Таким образом, развитие направления разработки противовирусных вакцин тесно связано с усовершенствованием протоколов исследований, которые предлагается дополнить оценкой параметров врожденного иммунитета, что позволит оптимизировать состав вакцин и будет способствовать появлению новых высокоэффективных и безопасных препаратов для профилактики ВО и ОГ.
1 «Руководство по доклиническим и клиническим исследованиям вакцин для профилактики ветряной оспы» ФГБУ НЦЭСМП Минздрава России, 2024.
- Heininger U, Seward JF. Varicella. Lancet. 2006 Oct 14;368(9544):1365-1376. Erratum in: Lancet. 2007 Feb 17;369(9561):558. PMID: 17046469. https://doi.org/10.1016/S0140-6736(06)69561-5
- Laing KJ, Ouwendijk WJD, Koelle DM, Verjans GMGM. Immunobiology of Varicella-Zoster Virus Infection. J Infect Dis. 2018 Sep 22;218(suppl_2):S68-S74. https://doi.org/10.1093/infdis/jiy403.Erratumin:JInfectDis.2019Apr16;219(9):1514.
- Burke BL, Steele RW, Beard OW, Wood JS, Cain TD, Marmer DJ. Immune responses to varicella-zoster in the aged. Arch Internal Med. 1982;142:291-293. https://doi.org/10.1001/archinte.1982.00340150091016
- Kawai K, Gebremeskel BG, Acosta CJ. Systematic review of incidence and complications of herpes zoster: towards a global perspective. BMJ Open. 2014;4:e004833. https://doi.org/10.1136/bmjopen-2014-004833
- Kost RG, Straus SE. Postherpetic neuralgia--pathogenesis, treatment, and prevention. N Engl J Med. 1996 Jul 4;335(1):32-42. PMID: 8637540. https://doi.org/10.1056/NEJM199607043350107
- Curran D, Callegaro A, Fahrbach K, Neupane B, Vroling H, van Oorschot D, Yawn BP. Meta-Regression of Herpes Zoster Incidence Worldwide. Infect Dis Ther. 2022 Feb;11(1):389-403. Epub 2021 Dec 7. PMID: 34874546; PMCID: PMC8650523. https://doi.org/10.1007/s40121-021-00567-8
- Weinberg A, Lazar AA, Zerbe GO, et al. Influence of age and nature of primary infection on varicella-zoster virus-specific cell-mediated immune responses. J Infect Dis. 2010;201:1024-1030. https://doi.org/10.1086/651199
- Moyer TJ, Zmolek AC, Irvine DJ. Beyond antigens and adjuvants: formulating future vaccines. J Clin Invest. 2016;126(3):799-808. https://doi.org/10.1172/JCI81083
- Anderluzzi G, Schmidt ST, Cunliffe R, et al. Rational design of adjuvants for subunit vaccines: The format of cationic adjuvants affects the induction of antigen-specific antibody responses. J Control Release. 2021;330:933-944. https://doi.org/10.1016/j.jconrel.2020.10.066
- Garcon N, Chomez P, Van Mechelen M. GlaxoSmithKline adjuvant systems in vaccines: concepts, achievements and perspectives. Expert Rev Vaccines. 2007;6(5):723-739. https://doi.org/10.1586/14760584.6.5.723
- Paston SJ, Brentville VA, Symonds P, et al. Cancer vaccines, adjuvants, and delivery systems. Front Immunol. 2021;12:627932. https://doi.org/10.3389/fimmu.2021.627932
- Zeng Y, Zou F, Xia N, Li S. In-depth review of delivery carriers associated with vaccine adjuvants: current status and future perspectives. Expert Rev Vaccines. 2023 Jan-Dec;22(1):681-695. PMID: 37496496. https://doi.org/10.1080/14760584.2023.2238807
- Iwasaki A, Omer SB. Why and how vaccines work. Cell. 2020;183(2): 290-295. https://doi.org/10.1016/j.cell.2020.09.040
- Honegr J, Malinak D, Dolezal R, et al. Rational design of novel TLR4 ligands by in silico screening and their functional and structural characterization in vitro. Eur J Med Chem. 2018;146:38-46.
- Зотова А.В., Свитич О.А. Вакцины против ветряной оспы и опоясывающего герпеса: от живых аттенуированных вакцин к генно-инженерным препаратам. БИОпрепараты. Профилактика, диагностика, лечение. 2025;25:4:461-474.
- Zotova AV, Svitich OA. Vakciny protiv vetryanoj ospy i opoyasyvayuschego gerpesa: ot zhivyh attenuirovannyh vakcin k genno-inzhenernym preparatam. BIOpreparaty. Profilaktika, diagnostika, lechenie. 2025;25:4:461-474. https://doi.org/10.30895/2221-996X-2025-645
- Cunningham AL, Levin MJ. Herpes zoster vaccines. J Infect Dis. 2018; 218(Suppl 2):S127-133. https://doi.org/10.1093/infdis/jiy382
- Didierlaurent AM, Laupèze B, Di Pasquale A, Hergli N, Collignon C, Garçon N. Adjuvant system AS01: helping to overcome the challenges of modern vaccines. Expert Rev Vaccines. 2016;16(1):55-63.20.
- Lecrenier N, Beukelaers P, Colindres R, et al. Development of adjuvanted recombinant zoster vaccine and its implications for shingles prevention. Expert Rev Vaccines. 2018;17(7):619-634. https://doi.org/10.1080/14760584.2018.1495565
- Harbecke R, Cohen JI, Oxman MN. Herpes zoster vaccines. J Infect Dis. 2021;224(12 Suppl 2):S429-442. https://doi.org/10.1093/infdis/jiab387
- Welsby I, Detienne S, N’Kuli F, et al. Lysosome-dependent activation of human dendritic cells by the vaccine adjuvant QS-21. Front Immunol. 2017;7:663.
- Eisenbarth SC, Colegio OR, O’Connor W, Sutterwala FS, Flavell RA. Crucial role for the Nalp3 inflammasome in the immunostimulatory properties of aluminium adjuvants. Nature. 2008 Jun 19;453(7198):1122-1126. Epub 2008 May 21. PMID: 18496530; PMCID: PMC4804622. https://doi.org/10.1038/nature06939
- Chen T, Sun J, Zhang S, Li T, Liu L, Xue W, Zhou L, Liang S, Yu Z, Zheng Q, Yu H, Cheng T, Zhang J, Gu Y, Li S, Xia N. Truncated glycoprotein E of varicella-zoster virus is an ideal immunogen for Escherichia coli-based vaccine design. Sci China Life Sci. 2023 Apr;66(4):743-753. Epub 2023 Feb 9. PMID: 36790656; PMCID: PMC9930067. https://doi.org/10.1007/s11427-022-2264-1
- Zhao T, Cai Y, Jiang Y, He X, Wei Y, Yu Y, Tian X. Vaccine adjuvants: mechanisms and platforms. Signal Transduct Target Ther. 2023 Jul 19;8(1):283. PMID: 37468460; PMCID: PMC10356842. https://doi.org/10.1038/s41392-023-01557-7
- Krarup AR, Abdel-Mohsen M, Schleimann MH, et al. The TLR9 agonist MGN1703 triggers a potent type I interferon response in the sigmoid colon. Mucosal Immunol. 2018;11(2):449-461. 46.
- Newman AM, Liu CL, Green MR, et al. Robust enumeration of cell subsets from tissue expression profi les. Nat Methods. 2015;12(5): 453-457.
- Жиров А.М., Ковалев Д.А., Курчева С.А., Пономаренко Д.Г., Куличенко А.Н. CPG олигонуклеотиды как адъюванты вакцин для профилактики инфекционных болезней. Молекулярная генетика, микробиология и вирусология. 2024;42(3):3-11. https://doi.org/10.17116/molgen2024420313
- Meng W, Yamazaki T, Nishida Y, Hanagata N. Nuclease-resistant immunostimulatory phosphodiester CpG oligodeoxynucleotides as human Toll-like receptor 9 agonists. BMC Biotechnol. 2011 Sep 26;11:88. PMID: 21943407; PMCID: PMC3189879. https://doi.org/10.1186/1472-6750-11-88
- Andrews CD, Huh MS, Patton K, Higgins D, Van Nest G, Ott G, Lee KD. Encapsulating immunostimulatory CpG oligonucleotides in listeriolysin O-liposomes promotes a Th1-type response and CTL activity. Mol Pharm. 2012 May 7;9(5):1118-1125. Epub 2012 Apr 6. PMID: 22376145; PMCID: PMC3733356. https://doi.org/10.1021/mp2003835
- Hopkins RJ, Daczkowski NF, Kaptur PE, Muse D, Sheldon E, LaForce C, Sari S, Rudge TL, Bernton E. Randomized, double-blind, placebo-controlled, safety and immunogenicity study of 4 formulations of Anthrax Vaccine Adsorbed plus CPG 7909 (AV7909) in healthy adult volunteers. Vaccine. 2013 Jun 26;31(30):3051-3058. Epub 2013 May 10. PMID: 23701746; PMCID: PMC3687017. https://doi.org/10.1016/j.vaccine.2013.04.063
- Rynkiewicz D, Rathkopf M, Sim I, Waytes AT, Hopkins RJ, Giri L, DeMuria D, Ransom J, Quinn J, Nabors GS, Nielsen CJ. Marked enhancement of the immune response to BioThrax® (Anthrax Vaccine Adsorbed) by the TLR9 agonist CPG 7909 in healthy volunteers. Vaccine. 2011 Aug 26;29(37):6313-6320. Epub 2011 May 30. PMID: 21624418. https://doi.org/10.1016/j.vaccine.2011.05.047
- Zang X, Li G, Zhu J, Dong X, Zhai Y. Evaluation of the adjuvant effect of imiquimod and CpG ODN 1826 in chimeric DNA vaccine against Japanese encephalitis. Int Immunopharmacol. 2024 Oct 25;140:112816. Epub 2024 Jul 30. PMID: 39083930. https://doi.org/10.1016/j.intimp.2024.112816
- Patent Int. WO2021176434A1 Cpg-adjuvanted sars-cov-2 virus vaccine. Application filed by Valneva Austria GmbH, Dynavax Technologies Corp. 10.09.2021.
- Лавров В.Ф., Свитич О.А., Казанова А.С. и др. Varicella Zoster-вирусная инфекция: иммунитет, диагностика и моделирование in vivo. Журнал микробиологии, эпидемиологии и иммунобиологии. 2019;4:82-89.
- Lavrov VF, Svitich OA, Kazanova AS. i dr. Varicella Zostervirusnaya infekciya: immunitet, diagnostika i modelirovanie in vivo. Zhurnal mikrobiologii, epidemiologii i immunobiologii. 2019;4:82-89. https://doi.org/10.36233/0372-9311-2019-4-82-89
- Zhang S, Zeng Y, Cui L, Zhang Y, Chen T, Xue W, Wang H, Liu H, Zhang Y, Chen L, Zhou L, Xiong Y, Zheng Q, Yu H, Cheng T, Zhang J, Gu Y, Li T, Xia N, Li S. Immunogenicity and cellular response of a herpes zoster virus gEgI fusion protein adjuvanted with CpG-emulsion in mice. J Nanobiotechnology. 2025 May 30;23(1):395. PMID: 40448056; PMCID: PMC12124028. https://doi.org/10.1186/s12951-025-03423-w
- Wang Y, Qi J, Cao H, Liu C. Immune Responses to Varicella-Zoster Virus Glycoprotein E Formulated with Poly(Lactic-co-Glycolic Acid) Nanoparticles and Nucleic Acid Adjuvants in Mice. Virol Sin. 2021 Feb;36(1):122-132. Epub 2020 Aug 5. PMID: 32757147; PMCID: PMC7973351. https://doi.org/10.1007/s12250-020-00261-y
- Lee SJ, Park HJ, Ko HL, Lee JE, Lee HJ, Kim H, Nam JH. Evaluation of glycoprotein E subunit and live attenuated varicella-zoster virus vaccines formulated with a single-strand RNA-based adjuvant. Immun Inflamm Dis. 2020 Jun;8(2):216-227. Epub 2020 Mar 13. PMID: 32167678; PMCID: PMC7212201. https://doi.org/10.1002/iid3.297
- Li Y, Tian S, Ai Y, Hu Z, Ma C, Fu M, Xu Z, Li Y, Liu S, Zou Y, Zhou Y, Jin J. A nanoparticle vaccine displaying varicella-zoster virus gE antigen induces a superior cellular immune response than a licensed vaccine in mice and non-human primates. Front Immunol. 2024 Jul 16;15:1419634. PMID: 39081325; PMCID: PMC11286566. https://doi.org/10.3389/fimmu.2024.1419634
- Jeong SK, Ham SJ, Baek SH, Jung EJ, Jo HJ, Cha HR, Lee JM, Ahn BC, Yum JS, Chun E. Lipo-pam™ adjuvanted herpes zoster vaccine induces potent gE-specific cellular and humoral immune responses. NPJ Vaccines. 2024 Aug 17;9(1):150. PMID: 39154056; PMCID: PMC11330477. https://doi.org/10.1038/s41541-024-00939-4
- Li J, Fu L, Guo X, Yang Y, Dong J, Wang G, Zhao A. Novel BC02 Compound Adjuvant Enhances Adaptive and Innate Immunity Induced by Recombinant Glycoprotein E of Varicella-Zoster Virus. Vaccines (Basel). 2022 Dec 15;10(12):2155. PMID: 36560565; PMCID: PMC9788605. https://doi.org/10.3390/vaccines10122155
- Wui SR, Kim KS, Ryu JI, Ko A, Do HTT, Lee YJ, Kim HJ, Lim SJ, Park SA, Cho YJ, Kim CG, Lee NG. Efficient induction of cell-mediated immunity to varicella-zoster virus glycoprotein E co-lyophilized with a cationic liposome-based adjuvant in mice. Vaccine. 2019 Apr 3;37(15):2131-2141. Epub 2019 Feb 28. PMID: 30827737. https://doi.org/10.1016/j.vaccine.2019.02.048
- Kim AR, Park J, Kim JH, Kwak JE, Cho Y, Lee H, Jeong M, Park SH, Shin EC. Herpes Zoster DNA Vaccines with IL-7 and IL-33 Molecular Adjuvants Elicit Protective T Cell Immunity. Immune Netw. 2018 Oct 31;18(5):e38. PMID: 30402333; PMCID: PMC6215899. https://doi.org/10.4110/in.2018.18.e38


Рекомендуем статьи по данной теме:
Абдоминальная псевдогрыжа: причины возникновения и хирургическая тактика.Эндоскопическая хирургия. 2026;32(1):45-53
Экспрессия NOD-подобных рецепторов в тканях пародонта пациентов с агрессивной формой пародонтита.Стоматология. 2025;104(4):17-21
Лечение сахарного диабета 1 типа.Профилактическая медицина. 2025;28(8):131-137
Сравнительная оценка гамма-интерфероновых тестов in vitro по выявлению клеточно-опосредованного иммунного ответа на рекомбинантные антигены Mycobacterium Tuberculosis в выявлении туберкулезной инфекции.Лабораторная служба. 2025;14(1):13-20
Динамика экспрессии NOD-подобных рецепторов клеток тканей пародонта пациентов с агрессивной формой пародонтита.Стоматология. 2024;103(6-2):10-14
Оценка специфической иммунологической активности in vitro комплекса рекомбинантных белков бруцелл.Молекулярная генетика, микробиология и вирусология. 2024;42(4):30-36
Лабораторная диагностика клеточного звена иммунной системы против SARS-CoV-2 (обзор литературы).Лабораторная служба. 2024;13(3):31-36