Ноцицептивная чувствительность у крыс в условиях хронического непредсказуемого мягкого стресса при введении блокатора рецепторов врожденного иммунного ответа
Резюме
ЦЕЛЬ ИССЛЕДОВАНИЯ
Изучение ноцицептивной чувствительности у крыс в условиях хронического непредсказуемого мягкого стресса (ХНМС) разной длительности при предварительном введении блокатора рецепторов врожденного иммунного ответа.
МАТЕРИАЛ И МЕТОДЫ
Исследование проведено на половозрелых самцах крыс Wistar. Для изучения последствий длительных стрессорных воздействий применяли модель ХНМС в течении 1—4 нед. Животным до ХНМС внутрибрюшинно вводили либо 1% диметилсульфоксид, либо селективный блокатор Toll-подобных рецепторов 4-го типа (TLR4). Перцептуальный компонент оценивали по латентному периоду реакции отведения хвоста, эмоциональный — по порогу вокализации.
РЕЗУЛЬТАТЫ
Установлено, что на ранних сроках ХНМС (1—2 нед) предварительное системное введение блокатора TLR4 предупреждает вызванное повторяющимися стрессогенными воздействиями ослабление перцептуального компонента ноцицепции у животных. На поздних сроках исследования (3 нед) после предварительной инъекции блокатора TLR4 наблюдается ослабление перцептуального компонента ноцицепции относительно такового у особей с изолированными стрессогенными воздействиями. Показано, что выраженность эмоционального компонента ноцицептивной чувствительности крыс на поздних сроках (3 нед) повторяющихся стрессогенных нагрузок в условиях предварительного введения блокатора TLR4 меньше, чем в исходном состоянии, а также чем у особей с изолированным моделированием ХНМС. Усиления эмоционального компонента ноцицептивной чувствительности на поздних сроках ХНМС (4 нед) не наблюдается в условиях предварительного введения блокатора TLR4.
ЗАКЛЮЧЕНИЕ
Полученные данные могут служить предпосылкой для разработки новых подходов к поиску мишеней для лекарственных средств с целью предупреждения или коррекции стресс-индуцированных изменений болевой чувствительности.
Ключевые слова
- хронический непредсказуемый мягкий стресс
- ноцицепция
- блокатор Toll-подобных рецепторов 4-го типа
Дата поступления: 09.06.2026
Дата принятия в печать: 27.06.2026
Дата публикации: 23.09.2026
Введение
Стресс рассматривают как состояние, при котором возникают нарушения гомеостаза под действием отрицательных эмоциогенных факторов [1]. Изменения гомеостаза, обусловленные активацией гипоталамо-гипофизарно-надпочечникового комплекса, сопряжены с перестройкой регуляции продукции стресс-реализующих гормонов и оказывают модулирующее влияние на иммунные функции [2]. Установлено, что острые стрессорные воздействия приводят к кратковременной активации иммунной системы с преобладанием реакций врожденного иммунитета с сопутствующим повышением концентрации цитокинов с провоспалительной активностью (интерлейкин (IL)-1β, IL-6) [3]. Следует подчеркнуть, что в состоянии острого стресса как провоспалительные цитокины (IL-1β), так и противовоспалительные цитокины (IL-4) оказывают модулирующее влияние на состояние иммунокомпетентных органов [4]. В свою очередь, длительный стресс характеризуется чрезмерной активацией гипоталамо-гипофизарно-надпочечникового комплекса, что связано с развитием глюкокортикоидной резистентности Т-лимфоцитов и их субпопуляций [5]. Стрессорные воздействия оказывают модулирующее влияние на ноцицептивную систему у млекопитающих. В частности, было показано, что продолжительное воздействие стрессоров изменяет функциональную активность лимбических структур мозга, способствует развитию нейровоспаления и нарушению функций антиноцицептивной системы [5, 6]. В предыдущих исследованиях на крысах установлено, что хронические стрессорные нагрузки приводят к изменению различных форм поведения, в частности двигательной и ориентировочно-исследовательской активности [7].
Длительные стрессорные нагрузки сопровождаются высвобождением поврежденными клетками эндогенных молекулярных паттернов, связанных с повреждением (Damage-associated molecular patterns — DAMPs): белков теплового шока, HMGB1 (high-mobility group protein B1, амфотерин) и других. В указанных процессах важную роль играют Toll-подобные рецепторы 4-го типа (Toll-like receptor 4 — TLR4), которые обеспечивают распознавание DAMPs иммунными клетками [8] и способствуют активации механизмов врожденного иммунитета. Указанные рецепторы локализованы как на иммунных, так и на других типах клеток у млекопитающих. Показано, что у мышей после хронического иммобилизационного стресса (ежедневное 2-часовое ограничение подвижности в течение 2 нед) наблюдается повышение экспрессии указанных рецепторов в гиппокампе, увеличение концентрации провоспалительных цитокинов в плазме крови и тканях головного мозга [9].
Следует подчеркнуть, что в нейральных клетках микроглии и макрофагах спинномозговых ганглиев TLR4 опосредованно участвуют в возникновении и реализации ноцицептивных реакций [10]. Кроме того, на модели хронического стресса социального поражения у самцов мышей с нокаутом гена рецепторов врожденного иммунитета было продемонстрировано снижение ноцицептивной чувствительности по сравнению с особями дикого типа [8].
Перспективным подходом к изучению иммунозависимых механизмов формирования ноцицептивных реакций при стрессорных нагрузках является применение ингибиторов TLR4. К их числу относится селективный ингибитор CLI-095, который широко используется в экспериментах на животных [11].
Для изучения последствий длительных стрессорных воздействий применяют модель хронического непредсказуемого мягкого стресса (ХНМС). Это позволяет воспроизводить изменения, характерные для состояния длительного стресса, включая дисрегуляцию гипоталамо-гипофизарно-надпочечникового комплекса и развитие нейровоспаления [12]. Используемый в данной модели подход основан на последовательном чередовании различных стрессоров, что позволяет исключить адаптацию к повторяющимся отрицательным эмоциогенным нагрузкам [13].
Следует отметить, что в современной научной литературе данные об изменениях ноцицептивной чувствительности при воздействии хронических стрессогенных факторов в условиях подавления иммунного ответа представлены недостаточно.
Цель исследования — изучение ноцицептивной чувствительности у крыс в условиях хронического непредсказуемого мягкого стресса разной длительности при предварительном введении блокатора рецепторов врожденного иммунного ответа.
Материал и методы
Исследование проведено на половозрелых самцах крыс Wistar (n=80, масса тела 265,5±23,6 г). Эксперименты одобрены комиссией по биомедицинской этике ФГБНУ «Федеральный исследовательский центр оригинальных и перспективных биомедицинских и фармацевтических технологий» (протокол №2 от 13.02.2024). Все процедуры выполнены в соответствии с требованиями Всемирного общества защиты животных (WSPA) и Европейской конвенции по защите экспериментальных животных. Животные содержались в стандартных условиях вивария и прошли 14-дневный период адаптации после доставки из питомника «Столбовая».
Было сформировано 8 групп животных. Крыс всех экспериментальных групп подвергали чередующимся стрессорным воздействиям различной длительности в модифицированной модели ХНМС [14]. Данная модель предусматривает применение мягких стрессоров в течение 7 дней. К используемым стрессорам относились наклон клетки на 30° в течение 7 ч; дневное освещение 17 ч; загрязненная клетка (0,5 мл воды в опилки) 24 ч; питьевая депривация 12 ч; пустая бутылка 12 ч; пищевая депривация 24 ч; тесная клетка (300×150×150 мм, 5 особей) 24 ч; удаление подстилки 24 ч. Недельное предъявление последовательности вышеуказанных стрессоров представляло собой одну серию. Было проведено 4 серии (1—4 нед) в зависимости от дизайна исследования.
Особи всех групп до ХНМС получали однократную внутрибрюшинную инъекцию следующих растворов: для четырех групп ДМСО-С (С-ХНМС, 1—4 недели) — 1% диметилсульфоксид (ДМСО) (димексид, ООО «Тульская фармацевтическая фабрика», Россия); для четырех групп CLI-095-С (С-ХНМС, 1—4 нед) — селективный блокатор TLR4 (CLI-095, резаторвид, Invivogen, Франция) в дозе 2 мг/кг массы тела, растворенный в 0,9% NaCl с доведением общего объема до 1 мл [11].
Перцептуальный компонент ноцицепции крыс оценивали по латентному периоду реакции отведения хвоста (ЛПРОХ, с) при светотермальном раздражении [11]. Эмоциональный компонент ноцицептивной чувствительности анализировали по показателю порога вокализации (ПВ, мА) при электрокожном раздражении хвоста [11].
Статистическую обработку данных проводили с использованием программ GraphPad Prism 8 (GraphPad Software, США) и Microsoft Office Excel 2021 (Microsoft, США). Так как распределение данных отличалось от нормального (тест Шапиро—Уилка), для оценки изменений показателей применяли непараметрический парный критерий Уилкоксона для связанных выборок (сравнения типа «до и после»). Поскольку исходные значения изучаемых показателей крыс между группами не различались (критерий Краскела—Уоллиса с поправкой по Данну), межгрупповое сравнение параметров групп ДМСО-С и CLI-095-С проводили между показателями после ХНМС к концу каждой недели эксперимента (1—4 нед) с использованием U-критерия Манна—Уитни. Данные на рис. 1, 2 представлены в процентах от исходного уровня (100%). Принятый уровень значимости различий составляет 5%.
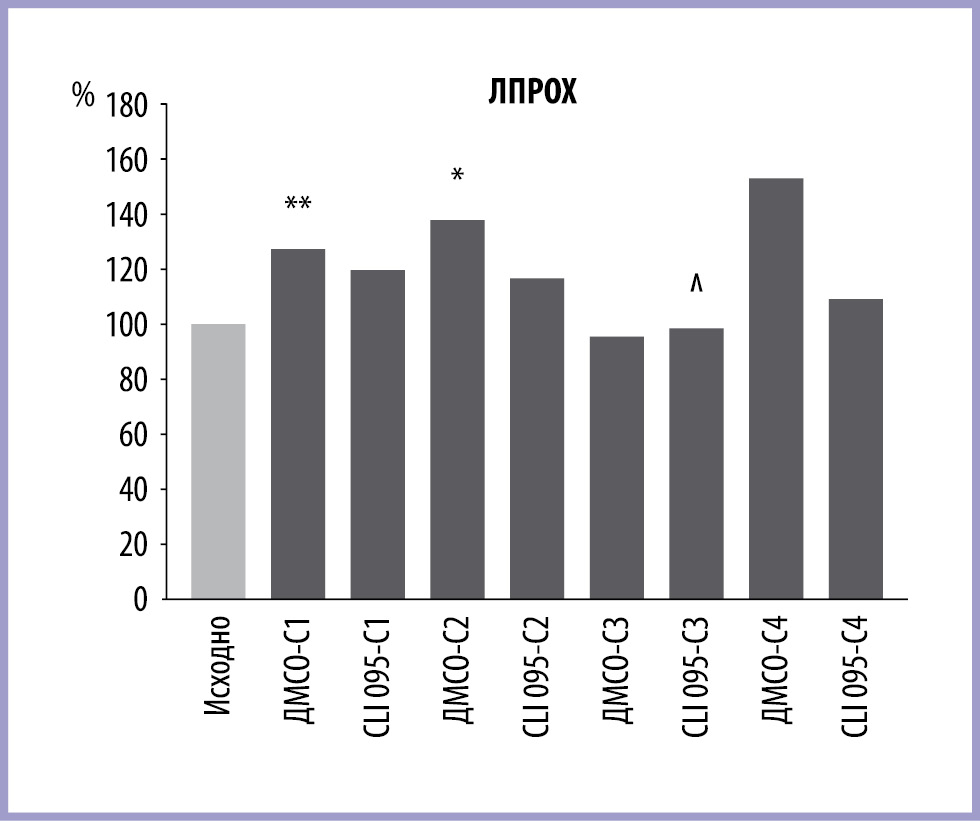
Рис. 1. Латентные периоды реакции отведения хвоста (ЛПРОХ) крыс на разных сроках эксперимента, в процентах от исходного уровня, 100%.
Здесь и на рис. 2: ДМСО — диметилсульфоксид; ХНМС — хронический непредсказуемый мягкий стресс; ДМСО-С — предварительная инъекция ДМСО и ХНМС; CLI-095-С — предварительная инъекция ингибитора TLR4 и ХНМС; С1—С4 — недели эксперимента. * — p<0,05, ** — p<0,01 по сравнению с исходным состоянием, ^ — p<0,05 по сравнению с ДМСО-С3.
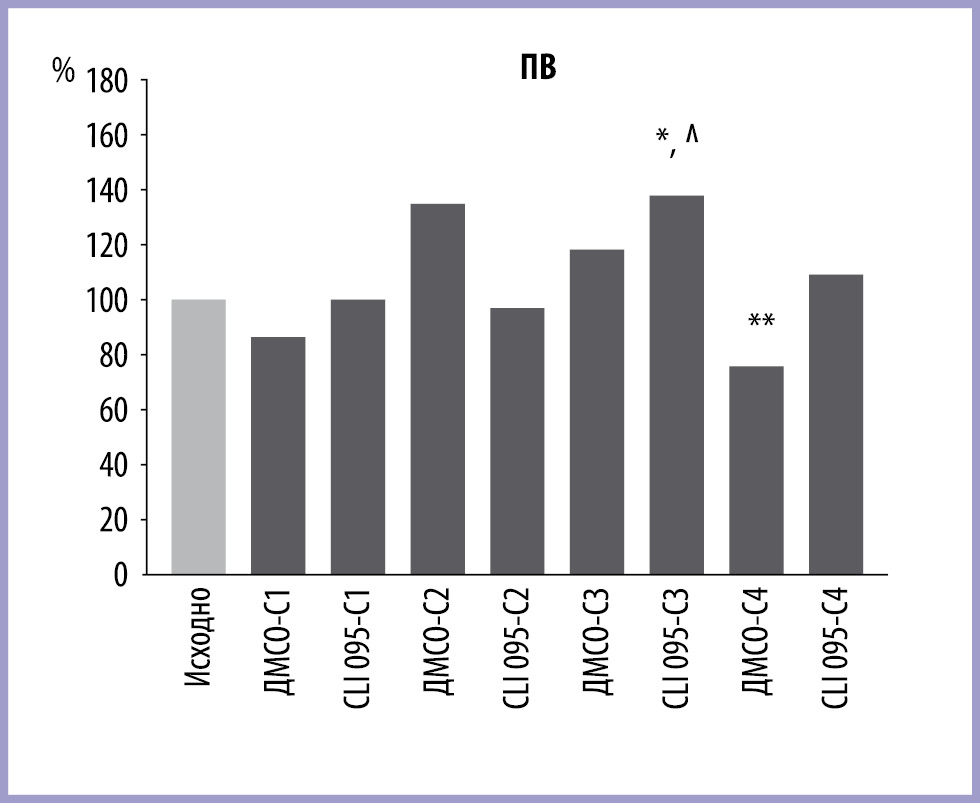
Рис. 2. Пороги вокализации (ПВ) крыс на разных сроках эксперимента, в процентах от исходного уровня, 100%.
Результаты
Изменения ЛПРОХ у животных в разные периоды эксперимента представлены на рис. 1, изменения ПВ — на рис. 2.
При изучении изменений показателя перцептуального компонента ноцицепции у крыс при внутригрупповом сравнении были получены следующие результаты. По окончании 1-й и 2-й недель многократных стрессогенных воздействий у животных с предварительным введением ДМСО при светотермальном раздражении ЛПРОХ увеличивался на 27,7% (p=0,009) и 37,9% (p=0,019) соответственно по сравнению с исходными значениями. По окончании 3-й и 4-й недель статистически значимых различий в сравнении с исходными значениями в исследуемых группах не выявлено.
У животных с предварительной инъекцией CLI-095 до ХНМС статистически значимых различий от исходных значений не обнаружено ни на одном из сроков наблюдений (1—4 нед).
При межгрупповом сравнении показателя ЛПРОХ были установлены следующие различия. По окончании 3-й недели последовательных стрессорных воздействий у особей с предварительной инъекцией CLI-095 параметр ЛПРОХ при ноцицептивном раздражении был выше на 20,7% (p=0,006) по сравнению с животными с предварительным введением ДМСО и последующим ХНМС. По окончании 1-й, 2-й и 4-й недель статистически значимых межгрупповых различий не обнаружено.
На следующем этапе исследования были проанализированы внутригрупповые изменения показателя эмоционального компонента ноцицептивной чувствительности у животных. Установлено, что у особей с введением ДМСО по окончании 1-й, 2-й и 3-й недель стрессогенных воздействий статистически значимых изменений анализируемого показателя не выявлено. Статистически значимые различия были обнаружены у крыс после 4-й недели стрессогенных нагрузок. В этой экспериментальной группе животных ПВ снижался на 41,9% (p=0,006) по сравнению с исходными значениями. При анализе изменений показателя ПВ у крыс с инъекцией CLI-095 и последующими стрессорными нагрузками к концу 1-й, 2-й и 4-й недель изменения изучаемого параметра не были статистически значимыми. К концу 3-й недели у животных с введением блокатора рецепторов врожденного иммунитета показатель ПВ увеличился на 36,6% (p=0,024) по сравнению с исходными данными.
При межгрупповом сравнении по окончании 1-й, 2-й и 4-й недель статистически значимых различий ПВ у исследуемых крыс обнаружено не было. К концу 3-й недели у особей с предварительной инъекцией CLI-095 и многократными стрессорными нагрузками показатель ПВ был выше на 38,5% (p=0,022) по сравнению с таковым у крыс с введением ДМСО и последующими стрессогенными воздействиями.
Обсуждение
В представленной работе изучен характер изменений перцептуального и эмоционального компонентов ноцицептивных реакций у крыс в условиях предварительного введения блокатора TLR4 при ХНМС различной длительности.
На ранних этапах эксперимента (1-я и 2-я недели) у животных, подвергнутых только ХНМС, было отмечено снижение перцептуального компонента ноцицепции, что может отражать развитие стресс-индуцированной анальгезии [15], тогда как в более поздние сроки эксперимента (3-я и 4-я недели) показатели ноцицептивной чувствительности не отличались от исходных значений. Известно, что стресс-индуцированная анальгезия опосредована активацией эндогенных опиоидных систем, а также вовлечением серотонинергических и норадренергических эфферентных путей в регуляцию передачи ноцицептивной информации на уровне спинного мозга [16]. Кроме того, стрессогенные воздействия могут оказывать влияние на нейроиммуноэндокринные механизмы регуляции физиологических функций, которые играют важную роль в модуляции болевой чувствительности [5, 17].
Было продемонстрировано, что перцептуальный компонент ноцицепции крыс при повторных стрессорных воздействиях в течение 1-й и 2-й недель не изменяется в условиях предварительного введения TLR4 по сравнению с исходными показателями. Можно предположить, что введение ингибитора рецепторов врожденного иммунного ответа на ранних сроках ХНМС предупреждает стресс-индуцированное снижение ноцицептивной чувствительности. Установлено, что TLR4 экспрессируются, в частности, микроглиальными клетками центральной нервной системы и участвуют в активации сигнальных каскадов с продукцией медиаторов воспаления [18]. В экспериментах на различных моделях хронической боли установлено, что чрезмерная активация рецепторов врожденного иммунного ответа может способствовать развитию центральной сенситизации и усилению ноцицептивной передачи [18, 19]. В условиях блокады рецепторов врожденного иммунитета наблюдается подавление активации микроглии и, как следствие, снижение интенсивности нейровоспалительных процессов. В исследовании на модели хронического иммобилизационного стресса у животных показано, что длительные стрессорные воздействия сопровождаются увеличением болевой чувствительности, а также повышением экспрессии TLR4 в дорсальных корешковых ганглиях [20]. При этом блокада рецепторов врожденного иммунитета приводит к уменьшению выраженности выявленных изменений.
В нашем исследовании установлено, что на 3-й и 4-й неделях эксперимента у животных всех групп не отмечается статистически значимых различий показателя перцептуального компонента ноцицепции по сравнению с исходными значениями, что может косвенно свидетельствовать об адаптации к предъявляемым стрессогенным факторам. Однако при межгрупповом сравнении у крыс с введением ингибитора рецепторов врожденного иммунного ответа по окончании 3-й недели опытов ноцицептивная чувствительность была ниже, чем у особей в условиях изолированного ХНМС. Полученные результаты могут свидетельствовать о том, что блокада TLR4 приводит к снижению ноцицептивной чувствительности в условиях длительных стрессорных воздействий [20].
У животных, находившихся только в условиях ХНМС, эмоциональный компонент ноцицепции не изменялся в 1—3-ю недели эксперимента, но снижался к 4-й неделе стрессогенных воздействий по сравнению с исходными параметрами.
У животных с инъекцией CLI-095 по окончании 1-й, 2-й и 4-й недель опытов значимых изменений показателя эмоционального компонента ноцицепции не обнаружено. У крыс указанной группы к концу 3-й недели установлено повышение ПВ, что свидетельствует о подавлении эмоционального компонента ноцицептивной чувствительности. В эти сроки эксперимента у животных с введением блокатора TLR4 наблюдается ослабление эмоционального компонента ноцицепции по сравнению с таковым у животных, подвергнутых изолированным стрессорным воздействиям. Вероятно, указанные различия могут быть связаны с продукцией DAMPs и усиленной активацией лимбических структур [11]. Известно, что эмоциональный компонент боли отражает субъективное восприятие, реализация которого происходит в том числе с вовлечением лимбических структур мозга (это миндалина, префронтальная кора, поясная извилина, гиппокамп) [5, 6]. Указанные структуры играют ключевую роль в формировании памяти, в том числе о стрессорных воздействиях или ноцицептивных раздражителях как потенциальной угрозе для организма [21]. Неспецифические медиальные таламические ядра с проекциями в лимбические структуры принимают участие в оценке эмоционального восприятия боли. Указанный механизм лежит в основе изменений вегетативных реакций, гормональных и метаболических процессов, а также активации механизмов памяти, направленной на извлечение опыта по устранению болевых ощущений [22]. Перцептуальный компонент ноцицептивной чувствительности отражает собственно ощущение боли и реализуется преимущественно через специфические латеральные таламо-кортикальные ядра, что обеспечивает быструю обработку ноцицептивных сигналов. Можно предположить, что блокада TLR4 нивелирует вызванные стрессогенными воздействиями изменения ноцицептивной чувствительности у животных с изолированным ХНМС на 4-й неделе эксперимента.
Полученные данные могут служить предпосылкой для разработки новых подходов к поиску мишеней для лекарственных средств с целью предупреждения или коррекции стресс-индуцированных изменений болевой чувствительности.
Заключение
На ранних сроках (1—2 нед) повторяющихся стрессогенных воздействий у крыс наблюдаются изменения перцептуального компонента ноцицептивной чувствительности, тогда как в поздний период (4 нед) — изменения эмоционального компонента ноцицептивной чувствительности.
На ранних сроках хронического непредсказуемого мягкого стресса (1—2 нед) предварительное системное введение блокатора TLR4 предупреждает вызванное повторяющимися стрессогенными воздействиями ослабление перцептуального компонента ноцицепции у животных.
На поздних сроках (3 нед) хронического непредсказуемого мягкого стресса после предварительной инъекции блокатора TLR4 у крыс наблюдается ослабление перцептуального компонента ноцицепции по сравнению с таковым у особей с изолированными стрессогенными воздействиями.
Выраженность эмоционального компонента ноцицептивной чувствительности животных на поздних сроках (3 нед) повторяющихся стрессогенных нагрузок в условиях предварительного введения блокатора TLR4 меньше, чем в исходном состоянии, а также чем у особей с изолированным моделированием хронического непредсказуемого мягкого стресса.
Усиления эмоционального компонента ноцицептивной чувствительности крыс на поздних сроках (4 нед) хронического непредсказуемого мягкого стресса не наблюдается в условиях предварительного введения блокатора TLR4.
Финансирование. Исследование выполнено в рамках госзадания «Исследование системных физиологических механизмов формирования психоэмоционального стресса и болевых реакций» №122040500027-7.
Funding. The study was carried out within the framework of the state assignment “Study of systemic physiological mechanisms of formation of psychoemotional stress and pain reactions” No. 122040500027-7.
Авторы заявляют об отсутствии конфликта интересов.
- Lu S, Wei F, Li G. The evolution of the concept of stress and the framework of the stress system. Cell Stress. 2021 Apr 26;5(6):76-85. PMID: 34124582; PMCID: PMC8166217. https://doi.org/10.15698/cst2021.06.250
- Chauhan A, Jain CK. Psychosomatic Disorder: The Current Implications and Challenges. Cardiovascular & Hematological Agents in Medicinal Chemistry. 2024;22(4):399-406. PMID: 37873912. https://doi.org/10.2174/0118715257265832231009072953
- Tang L, Cai N, Zhou Y, Liu Y, Hu J, Li Y, Yi S, Song W, Kang L, He H. Acute stress induces an inflammation dominated by innate immunity represented by neutrophils in mice. Frontiers in Immunology. 2022 Sept 29;13: 1014296. PMID: 36248830; PMCID: PMC9556762. https://doi.org/10.3389/fimmu.2022.1014296
- Перцов С.С., Коплик Е.В., Калиниченко Л.С. Сравнительный анализ действия цитокинов на состояние тимуса, надпочечников и селезенки у крыс с разными поведенческими характеристиками. Бюллетень экспериментальной биологии и медицины. 2010;150(9):244-247. https://doi.org/10.1007/s10517-011-1122-5
- Walsh CP, Bovbjerg DH, Marsland AL. Glucocorticoid resistance and β2-adrenergic receptor signaling pathways promote peripheral pro-inflammatory conditions associated with chronic psychological stress: A systematic review across species. Neuroscience & Biobehavioral Reviews. 2021 Sept;128:117-135. Epub 2021 Jun 8. PMID: 34116126; PMCID: PMC8556675. https://doi.org/10.1016/j.neubiorev.2021.06.013
- Li M-J, Liu L-Y, Chen L, Cai J, Wan Y, Xing G-G. Chronic stress exacerbates neuropathic pain via the integration of stress-affect–related information with nociceptive information in the central nucleus of the amygdala. Pain. 2017 Apr;158(4):717-739. https://doi.org/10.1097/j.pain.0000000000000827
- Перцов С.С. Поведение крыс при смещении светового режима и введении мелатонина. Российский физиологический журнал им. И.М. Сеченова. 2005;91(7):802-809. https://doi.org/10.1007/s11055-006-0086-9
- Borges Paes Lemes J, Panichkina A, Franco Malange K, Morado-Urbina CE, Dochnal SA, Jadhav S, Dolmat M, Pagliusi M Jr, Navia-Pealez JM, Corr M, Miller YI, Yaksh TL. Chronic Pain Induced by Social Defeat Stress in Juvenile Mice Depends on TLR4. Cells. 2025 Feb 27;14(5):350. PMID: 40072079; PMCID: PMC11898947. https://doi.org/10.3390/cells14050350
- Medina-Rodriguez EM, Rice KC, Jope RS, Beurel E. Comparison of inflammatory and behavioral responses to chronic stress in female and male mice. Brain, Behavior, and Immunity. 2022 Nov;106:180-197. Epub 2022 Sept 01. PMID: 36058417; PMCID: PMC9561002. https://doi.org/10.1016/j.bbi.2022.08.017
- Zhang H, Li Y, de Carvalho-Barbosa M, Kavelaars A, Heijnen CJ, Albrecht PJ, Dougherty PM. Dorsal Root Ganglion Infiltration by Macrophages Contributes to Paclitaxel Chemotherapy-Induced Peripheral Neuropathy. J Pain. 2016 July;17(7):775-786. Epub 2016 Mar 12. PMID: 26979998; PMCID: PMC4939513. https://doi.org/10.1016/j.jpain.2016.02.011
- Абрамова А.Ю., Перцов С.С., Козлов А.Ю., Никенина Е.В., Коплик Е.В. Влияние ингибитора Toll-подобных рецепторов на ноцицепцию после иммобилизационного стресса. Российский журнал боли. 2019;17(4):13-19. https://doi.org/10.25731/RASP.2019.04.36
- Sharma S, Chawla S, Kumar P, Ahmad R, Verma PK. The chronic unpredictable mild stress (CUMS) Paradigm: Bridging the gap in depression research from bench to bedside. Brain Research. 2024 Nov 15;1843:149123. https://doi.org/10.1016/j.brainres.2024.149123
- Скрипкина Д.В., Абрамова А.Ю., Никенина Е.В., Перцов С.С. Ноцицептивная чувствительность и масса тела у крыс в условиях хронического непредсказуемого стресса. Российский журнал боли. 2024;22(2):5-10. https://doi.org/10.17116/pain2024220215
- Papp M, Willner P. Models of Affective Illness: Chronic Mild Stress in the Rat. Curr Protoc. 2023 Mar;3(3):e712. PMID: 36892313. https://doi.org/10.1002/cpz1.712
- Gamaro GD, Xavier MH, Denardin JD, Pilger JA, Ely DR, Ferreira MB, Dalmaz C. The effects of acute and repeated restraint stress on the nociceptive response in rats. Physiology & Behavior. 1998 Feb 15;63(4):693-7. PMID: 9523917. https://doi.org/10.1016/s0031-9384(97)00520-9
- Ferdousi M, Finn DP. Chapter 4. Stress-induced modulation of pain: Role of the endogenous opioid system. In: O’Mara S. Progress in Brain Research. Elsevier; 2018;239:121-177. ISSN 0079-6123, ISBN 9780444641670. https://doi.org/10.1016/bs.pbr.2018.07.002
- Fülöp B, Borbély É, Helyes Z. How does chronic psychosocial distress induce pain? Focus on neuroinflammation and neuroplasticity changes. Brain, Behavior, & Immunity – Health. 2025 Feb 10;44:100964. PMID: 40034488; PMCID: PMC11875130. https://doi.org/10.1016/j.bbih.2025.100964
- Bruno K, Woller S, Miller Y, Yaksh T, Wallace M, Beaton G, Chakravarthy K. Targeting toll-like receptor-4 (TLR4)—an emerging therapeutic target for persistent pain states. Pain. 2018;159(10):1908-1915. https://doi.org/10.1097/j.pain.0000000000001306
- Han X, Shao J, Ren X, Li Y, Yu W, Lin C, Li L, Sun Y, Xu B, Luo H, Zhu C, Cao J, Li Z. The different mechanisms of peripheral and central TLR4 on chronic postsurgical pain in rats. J Anat. 2021 July;239(1):111-124. Epub 2021 Mar 17. PMID: 33730389; PMCID: PMC8197940. https://doi.org/10.1111/joa.13406
- Rodríguez-Palma EJ, Velazquez-Lagunas I, Salinas-Abarca AB, Vidal-Cantú GC, Escoto-Rosales MJ, Castañeda-Corral G, Fernández-Guasti A, Granados-Soto V. Spinal alarmin HMGB1 and the activation of TLR4 lead to chronic stress-induced nociceptive hypersensitivity in rodents. European Journal of Pharmacology. 2023 Aug 5;952:175804. Epub 2023 May 25. PMID: 37244377. https://doi.org/10.1016/j.ejphar.2023.175804
- Николенко В.Н., Осадчий А.С., Лобанова А.К., Исакова Т.А., Жаров Н.А., Жарова Н.В. Функциональная анатомия структур лимбической системы, вовлеченных в развитие посттравматического стрессового расстройства: анализ анатомо-клинических исследований. Неврология, нейропсихиатрия, психосоматика. 2024;16(2):69-75. https://doi.org/10.14412/2074-2711-2024-2-69-75
- Groh A, Krieger P, Mease RA, Henderson L. Acute and Chronic Pain Processing in the Thalamocortical System of Humans and Animal Models. Neuroscience. 2018;387:58-71. https://doi.org/10.1016/j.neuroscience.2017.09.042


Рекомендуем статьи по данной теме:
Анальгетическая активность впервые синтезированного соединения из класса гексаазаизовюрцитанов: исследование in vivo в тестах ноцицепции.Российский журнал боли. 2025;23(3):5-10
Острая послеоперационная боль у детей в нейрохирургии: анализ состояния проблемы и оценка эффективности существующих практик обезболивания.Анестезиология и реаниматология. 2025;(1):30-35
Пуринергические механизмы обезболивания: дань моде или реальная возможность повысить качество анальгетической терапии?Российский журнал боли. 2024;22(4):86-95