Нарушение биогенеза наружной мембраны ведет к аттенуации Yersinia pseudotuberculosis
Журнал: Молекулярная генетика, микробиология и вирусология. 2025;43(2):29-34.
DOI: 10.17116/molgen20254302129
Прочитано: 766 раз
Резюме
ЦЕЛЬ ИССЛЕДОВАНИЯ
Изучение влияния делеции генов, кодирующих биогенез компонентов комплекса белков наружной мембраны, на вирулентность мутантов псевдотуберкулезного микроба.
МАТЕРИАЛ И МЕТОДЫ
Мутанты Yersinia pseudotuberculosis по генам surA, degP, bamB и ompH получены методом RedGam-мутагенеза с использованием суицидных векторов и охарактеризованы по скорости роста, чувствительности к антибиотикам, солям желчных кислот и додецилсульфату натрия, а также к бактерицидному действию нормальной человеческой сыворотки. Оценку суммарной композиции белков наружной мембраны определяли методом ДСН-ПААГ. Вирулентность DsurA-, DdegP-, DbamB- и DompH-штаммов изучали при подкожном, внутрибрюшинном и оральном заражении беспородных мышей.
РЕЗУЛЬТАТЫ
Установлено, что белки BamB, OmpH и SurA необходимы для поддержания целостности клеточной оболочки псевдотуберкулезного микроба, белки SurA и BamB важны для устойчивости к бактерицидному действию комплемента сыворотки крови. Утрата способности к синтезу SurA, DegP или BamB сопровождалась значительной аттенуацией мутантов.
ЗАКЛЮЧЕНИЕ
Гены surA, degP, bamB могут быть использованы в качестве потенциальных молекулярных мишеней при конструировании вакцинных штаммов Y. pseudotuberculosis.
Ключевые слова
- ингибиторы вирулентности
- наружная мембрана
- шапероны
- Yersinia pseudotuberculosis
Дата поступления: 14.03.2025
Дата принятия в печать: 16.04.2025
Дата публикации: 02.07.2025
Введение
Внешняя мембрана грамотрицательных бактерий представляет собой асимметричный липидный бислой, внутренняя часть которого состоит из фосфолипидов, а внешняя представлена в основном липополисахаридами (ЛПС) и мозаично расположенными белками внешней мембраны [1]. Белки внешней мембраны (БВМ) синтезируются в цитоплазме и транслоцируются в периплазматическое пространство через внутреннюю мембрану с помощью Sec-системы (General Secretory Pathway (GSP) или Sec pathway), при этом N-концевая сигнальная последовательность отрезается [2]. Периплазматические шапероны, такие как SurA или Skp (OmpH), связываются с незрелыми БВМ, обеспечивают им защиту от протеолиза, поддерживают в неденатурированном состоянии и направляют во внешнюю мембрану [3]. Третий шаперон, DegP, функционирует, главным образом, как протеаза, разрушая неправильно свернутые и агрегированные БВМ [4]. Существуют два пути переноса БВМ через периплазму шаперонами: с участием SurA или Skp/DegP [3]. Большинство БВМ переносятся шапероном SurA, но при этом могут использовать Skp/DegP в качестве запасного пути в стрессовых условиях [3, 5]. Показано, что часть белков, тесно связанных с патогенным потенциалом бактерий, ориентированы на взаимодействие с SurA для корректного встраивания во внешнюю мембрану [6—8]. Показано, что сборку и вставку белков с β-цилиндрической структурой во внешнюю мембрану осуществляет олигомерный мембран-ассоциированный белковый комплекс (β-barrel assembly machinery — BAM) [9]. У Escherichia coli этот мультибелковый комплекс состоит из пяти белков, из которых BamA и BamD являются существенными компонентами, а BamB, BamC и BamE- несущественными [3, 9]. Высказано предположение, что BamB увеличивает эффективность биогенеза БВМ. Этот белок представляет собой каркас внутри олигомерного мембран-ассоциированного белкового комплекса, на котором происходит сборка β-цилиндрической структуры БВМ [10].
Yersinia pseudotuberculosis — энтеропатогенная грамотрицательная бактерия, относящаяся к семейству Enterobacterales, вызывающая псевдотуберкулез — склонное к затяжному течению заболевание желудочно-кишечного тракта средней тяжести [11]. Это пищевая зоонозная инфекция природно-очагового характера с основным резервуаром среди диких и синантропных грызунов, домашних и сельскохозяйственных животных [11—13]. Патогенный потенциал Y. pseudotuberculosis определяют несколько факторов, наиболее важными из которых являются белки адгезин A (YadA) [14], инвазин (Inv) [15] и система секреции третьего типа [16]. YadA и Inv опосредуют связывание бактерии с клетками хозяина через белки внеклеточного матрикса и/или ß1-интегрины [15]. Помимо облегчения прикрепления к клеткам хозяина YadA также опосредует устойчивость к бактерицидной активности сыворотки крови путем взаимодействия с различными отрицательными регуляторами каскада активации комплемента [17].
Настоящее исследование направлено на определение роли несущественных компонентов комплекса биогенеза белков наружной мембраны (BamB, DegP, OmpH, SurA) в патогенности Y. pseudotuberculosis.
Материал и методы
Штаммы и условия культивирования. Бактерии E. coli, Yersinia pestis или Y. pseudotuberculosis культивировали на жидких и плотных питательных средах, Хоттингера (ФБУН «ГНЦ ПМБ») или LB (Luria Bertani broth medium: триптон — 1%, дрожжевой экстракт — 0,5%, натрий хлористый — 1%).
Животные. В экспериментах использовали самцов и самок беспородных мышей массой 20±1 г. Условия содержания, ухода и проведения манипуляций с лабораторными животными полностью соответствовали требованиям СанПиН 3.3686—21 «Санитарно- эпидемиологические требования по профилактике инфекционных болезней». Все исследования проводили в полном соответствии с этическими нормами после получения одобрения специализированного комитета по биоэтике ФБУН «ГНЦ ПМБ» (ВП2021/3 от 02.11.21).
Получение нокаутных мутантов. Замену кодирующих последовательностей генов surA, degP, bamB и ompH в штамме Y. pseudotuberculosis 85 pCad+ на маркер устойчивости к антибиотику проводили методом сайт-направленного мутагенеза с использованием суицидных векторов, сконструированных на основе плазмиды pCVD442 [18]. После инактивации генов DsurA::kan, DdegP::kan, DbamB::kan, DompH::cat удаление кассет устойчивости к антибиотику осуществляли с помощью плазмиды pCP20, как описано ранее [19]. Для подтверждения успешной замены генов использовали метод полимеразой цепной реакции.
Оценку экспериментальных штаммов по показателям скорости роста, чувствительности к антибиотикам, солям желчных кислот и додецилсульфату натрия проводили ранее описанными методами [20].
Выделение белков внешней мембраны. Фракции белков, локализованных во внешней мембране, получали способом, описанным ранее [21]. Пробы белков в равном объеме лизирующего буфера инкубировали при температуре 99 °C в течение 5 мин. Разделение белков полученных образцов проводили методом ДСН-ПААГ [22].
Определение вирулентности. Вирулентность мутантных штаммов Y. pseudotuberculosis 85DsurA, 85DdegP, 85DbamB и 85DompH для лабораторных мышей оценивали путем определения LD50 в сравнении с исходным штаммом Y. pseudotuberculosis 85. Инфицирование животных осуществляли подкожно, внутрибрюшинно или перорально десятикратными разведениями культур, выращенных в течение 24 ч при температуре 28 °C в изотоническом растворе хлорида натрия (0,9 %). За состоянием животных наблюдали в течение 21 сут. Величины LD50 и доверительные интервалы определяли по методу Kärber в модификации И.П. Ашмарина и А.А. Воробьева [23].
Чувствительность к бактерицидному действию нормальной человеческой сыворотки определяли по методике M.G. Barnes и соавт. [24]. Сравнивали жизнеспособность бактерий исследуемых штаммов с концентрацией 107 КОЕ/мл после воздействия нормальной человеческой сыворотки (НЧС) и сыворотки с инактивированным комплементом (тНЧС).
Статистический анализ. Данные представлены в виде среднего значения ± стандартное отклонение. Для статистического анализа использовали GraphPadPrism 6 (GraphPadSoftware, LaJolla, CA) с применением однофакторного дисперсионного анализа ANOVA. Различия считали статистически значимыми при уровне достоверности p≤0,05.
Особенности роста штаммов Y. pseudotuberculosis с нокаутированными генами
При температуре 28 °C и температуре хозяина 37 °C изучены кривые роста штаммов Y. pseudotuberculosis 85 с индивидуальными нокаутами генов surA, degP, bamB и ompH (рис. 1, см. https://mediasphera.ru/upload/medialibrary/files/Mol_genetika_2025_02_031_add.zip). При температуре 28 °C выявлено замедление роста бактериальных штаммов с дефектами синтеза белков SurA, OmpH, DegP или BamB по сравнению со штаммом «дикого» типа. Различия в скорости роста становились заметными через 7—9 ч после инокуляции и сохранялись в течение всего эксперимента. При температуре культивирования 37 °C дефект скорости роста был наиболее выражен у штамма Y. pseudotuberculosis 85DbamB, скорость роста штаммов с мутациями DompH, DdegP занимала промежуточной положение, а для штамма DsurA не отличалась от исходного варианта Y. pseudotuberculosis 85.
Оценка целостности и проницаемости наружной мембраны
В ходе исследования провели оценку чувствительности к рифампицину (Rif), энрофлоксацину (Enr), ванкомицину (Van), доксициклину (Do), азитромицину (Azm) нокаутных мутантов и исходного штамма Y. pseudotuberculosis, культивированных при температуре 28 °C, с целью изучения целостности и проницаемости наружной мембраны (рис. 2, см. https://mediasphera.ru/upload/medialibrary/files/Mol_genetika_2025_02_031_add.zip). Штамм Y. pseudotuberculosis 85ΔbamB обладал повышенной чувствительностью ко всем антибиотикам, кроме рифампицина. Штамм с мутацией ΔompH приобрел чувствительность к ванкомицину. Таким образом, индивидуальные нокауты генов bamB и ompH повышают эффективность отдельных антибиотиков в отношении возбудителя псевдотуберкулеза.
Для определения целостности наружной мембраны бактерий может быть использован анализ их устойчивости к детергентам, таким как ДСН и дезоксихолат натрия. Как показано в табл. 2, штамм DbamB демонстрирует неспособность к росту на среде, содержащей ДСН. Кроме того, этот штамм проявлял повышенную чувствительность к 0,05 % раствору дезоксихолата натрия. Аналогичную повышенную чувствительность к 0,05 % дезоксихолата натрия наблюдали у мутантных штаммов с делециями в генах surA и ompH.
Таблица 2. Чувствительность к солям желчных кислот и додецилсульфату натрия мутантных штаммов Y. pseudotuberculosis
Штамм | Рост в среде с дезоксихолатом натрия (0,05%) 28 °C/37 °C | Рост в среде с додецилсульфатом натрия (0,012%) 28 °C/37 °C | ||||
108 | 107 | 106 | 108 | 107 | 106 | |
85 | R/R | R/R | R/R | +/+ | +/+ | +/- |
ΔsurA | R/R | R/R | R/R | +/+ | +/+ | -/- |
ΔdegP | R/R | R/R | R/R | +/+ | +/+ | +/+ |
ΔbamB | R/S | R/S | R/S | +/+ | +/+ | -/- |
ΔompH | R/R | R/R | R/R | +/+ | +/+ | -/- |
Полученные данные в целом подтверждают выводы, сделанные при анализе чувствительности к антибиотикам, и свидетельствуют о том, что BamB и OmpH играют важную роль в поддержании структурной целостности клеточной оболочки у возбудителя псевдотуберкулеза.
Исследование композиции белков
Структурную целостность наружной мембраны определяет ее белковая композиция. Мы сравнили белковый состав фракций наружных мембран, полученных из эквивалентных количеств бактерий штамма «дикого» типа и мутантов ΔsurA, ΔdegP, ΔbamB и ΔompH, с применением ДСН-ПААГ и окрашивания Кумасси G-250 (рис. 3). В ходе исследования выявлено существенное снижение уровня синтеза большинства белков наружной мембраны у штаммов 85DsurA, 85DbamB и 85DompH. Утрата белка DegP сопровождалась значительным повышением уровня продукции белков наружной мембраны.
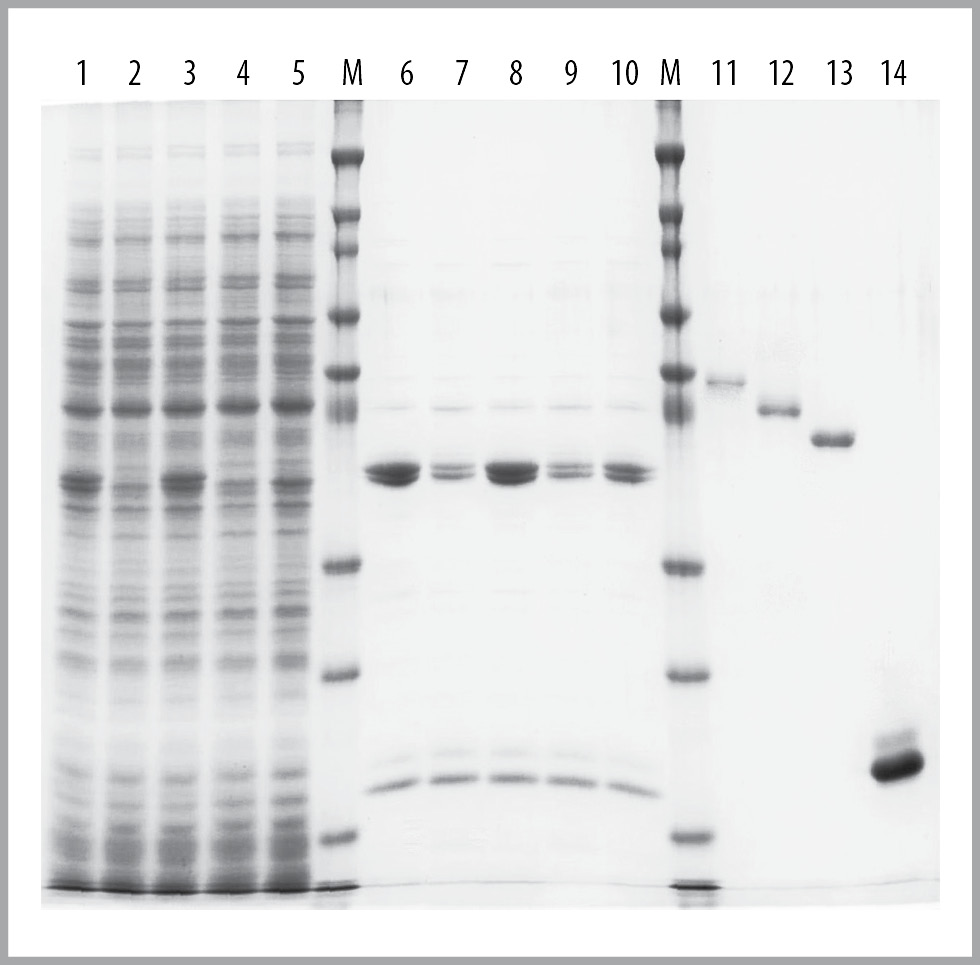
Рис. 3. Изменения в композиции белков при утрате SurA, OmpH, DegP, BamB Y. pseudotuberculosis.
1 — термолизат 85; 2 — термолизат ΔsurA; 3 — термолизат ΔdegP; 4 — термолизат ΔbamB; 5 — термолизат ΔompH; M — маркер Spectra Multicolor Broad Range Protein Ladder (Thermo Scientific, Литва); 6 — наружная мембрана 85; 7 — наружная мембрана ΔsurA; 8 — наружная мембрана ΔdegP; 9 — наружная мембрана ΔbamB; 10 — наружная мембрана ΔompH; М — маркер Spectra Multicolor Broad Range Protein Ladder (Thermo Scientific, Литва); 11 — белок SurA-His6; 12 — белок DegP-His6; 13 — белок BamB-His6; 14 — белок OmpH-His6.
Устойчивость к действию нормальной человеческой сыворотки
Поверхностные структуры грамотрицательных бактерий (капсула, липополисахарид, белки наружной мембраны) играют важную роль во взаимодействии с системой комплемента нормальной человеческой сыворотки (НЧС). Исходный штамм Y. pseudotuberculosis 85 после культивирования при температуре 28 ◦C или 37 ◦C был способен противостоять действию комплемента НЧС, что проявлялось в незначительном снижении количества жизнеспособных бактерий после 1 ч инкубации в 80 %-ной НЧС по сравнению с тНЧС. В то же время штаммы Y. pseudotuberculosis 85 с делециями генов surA и bamB демонстрировали полную чувствительность к комплементу. После 1 ч инкубации в 80 %-ной НЧС жизнеспособные микробные клетки не были обнаружены, что указывает на критическую роль продуктов этих генов в устойчивости к комплементу сыворотки (рис. 4).
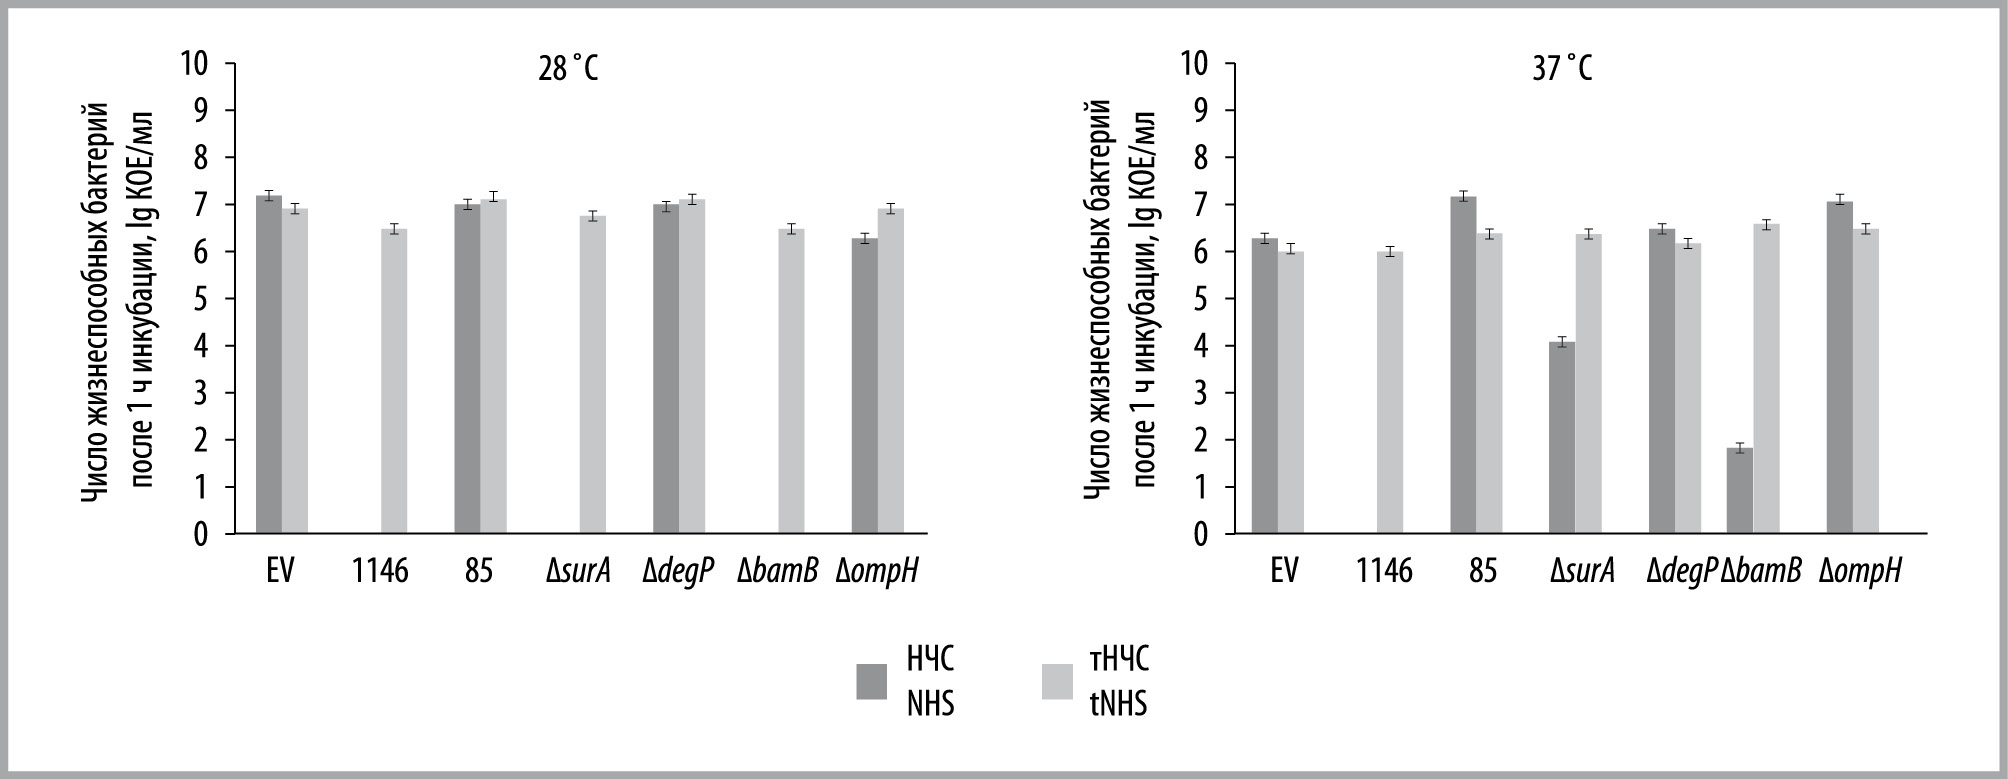
Рис. 4.Устойчивость к действию нормальной человеческой сыворотки мутантных штаммов Y. pseudotuberculosis.
Важность нокаута для вирулентности штаммов для мышей
В ходе эксперимента мыши, которым вводили максимальные дозы штаммов Y. pseudotuberculosis 85 с мутациями в генах surA, degP, bamB и DompH (109 КОЕ при подкожном введении и 2×10⁸ КОЕ при внутрибрюшинном и оральном введении) не проявляли признаков заболевания. Штамм Y. pseudotuberculosis 85DompH показал сопоставимый уровень аттенуации со штаммами 85DsurA, 85DdegP и 85DbamB при подкожном и оральном введении. Однако при внутрибрюшинном введении он оказался менее аттенуирован (LD50=6,3×10⁷ КОЕ) (табл. 3).
Таблица 3.Вирулентность мутантных штаммов Y. pseudotuberculosis при различных способах введения
Штамм | LD50, КОЕ | ||
Подкожно | Внутрибрюшинно | Орально | |
85 | 6,8×10⁶ (1,7×10⁶)÷(2,7×10⁷) | 3,2×10⁴ (7,9×10³)÷(1,3×10⁵) | 6,8×10⁶ (1,7×10⁶)÷(2,7×10⁷) |
ΔSurA | >109 | >2×10⁸ | >2×10⁸ |
ΔdegP | >109 | >2×10⁸ | >2×10⁸ |
ΔbamB | >109 | >2×10⁸ | >2×10⁸ |
ΔompH | >109 | 6,3×10⁷ (2,0×10⁷)÷(6,3×10⁸) | >2×10⁸ |
После заражения исходным штаммом Y. pseudotuberculosis 85 все лабораторные мыши пали в течение 7 дней наблюдения (рис. 5).
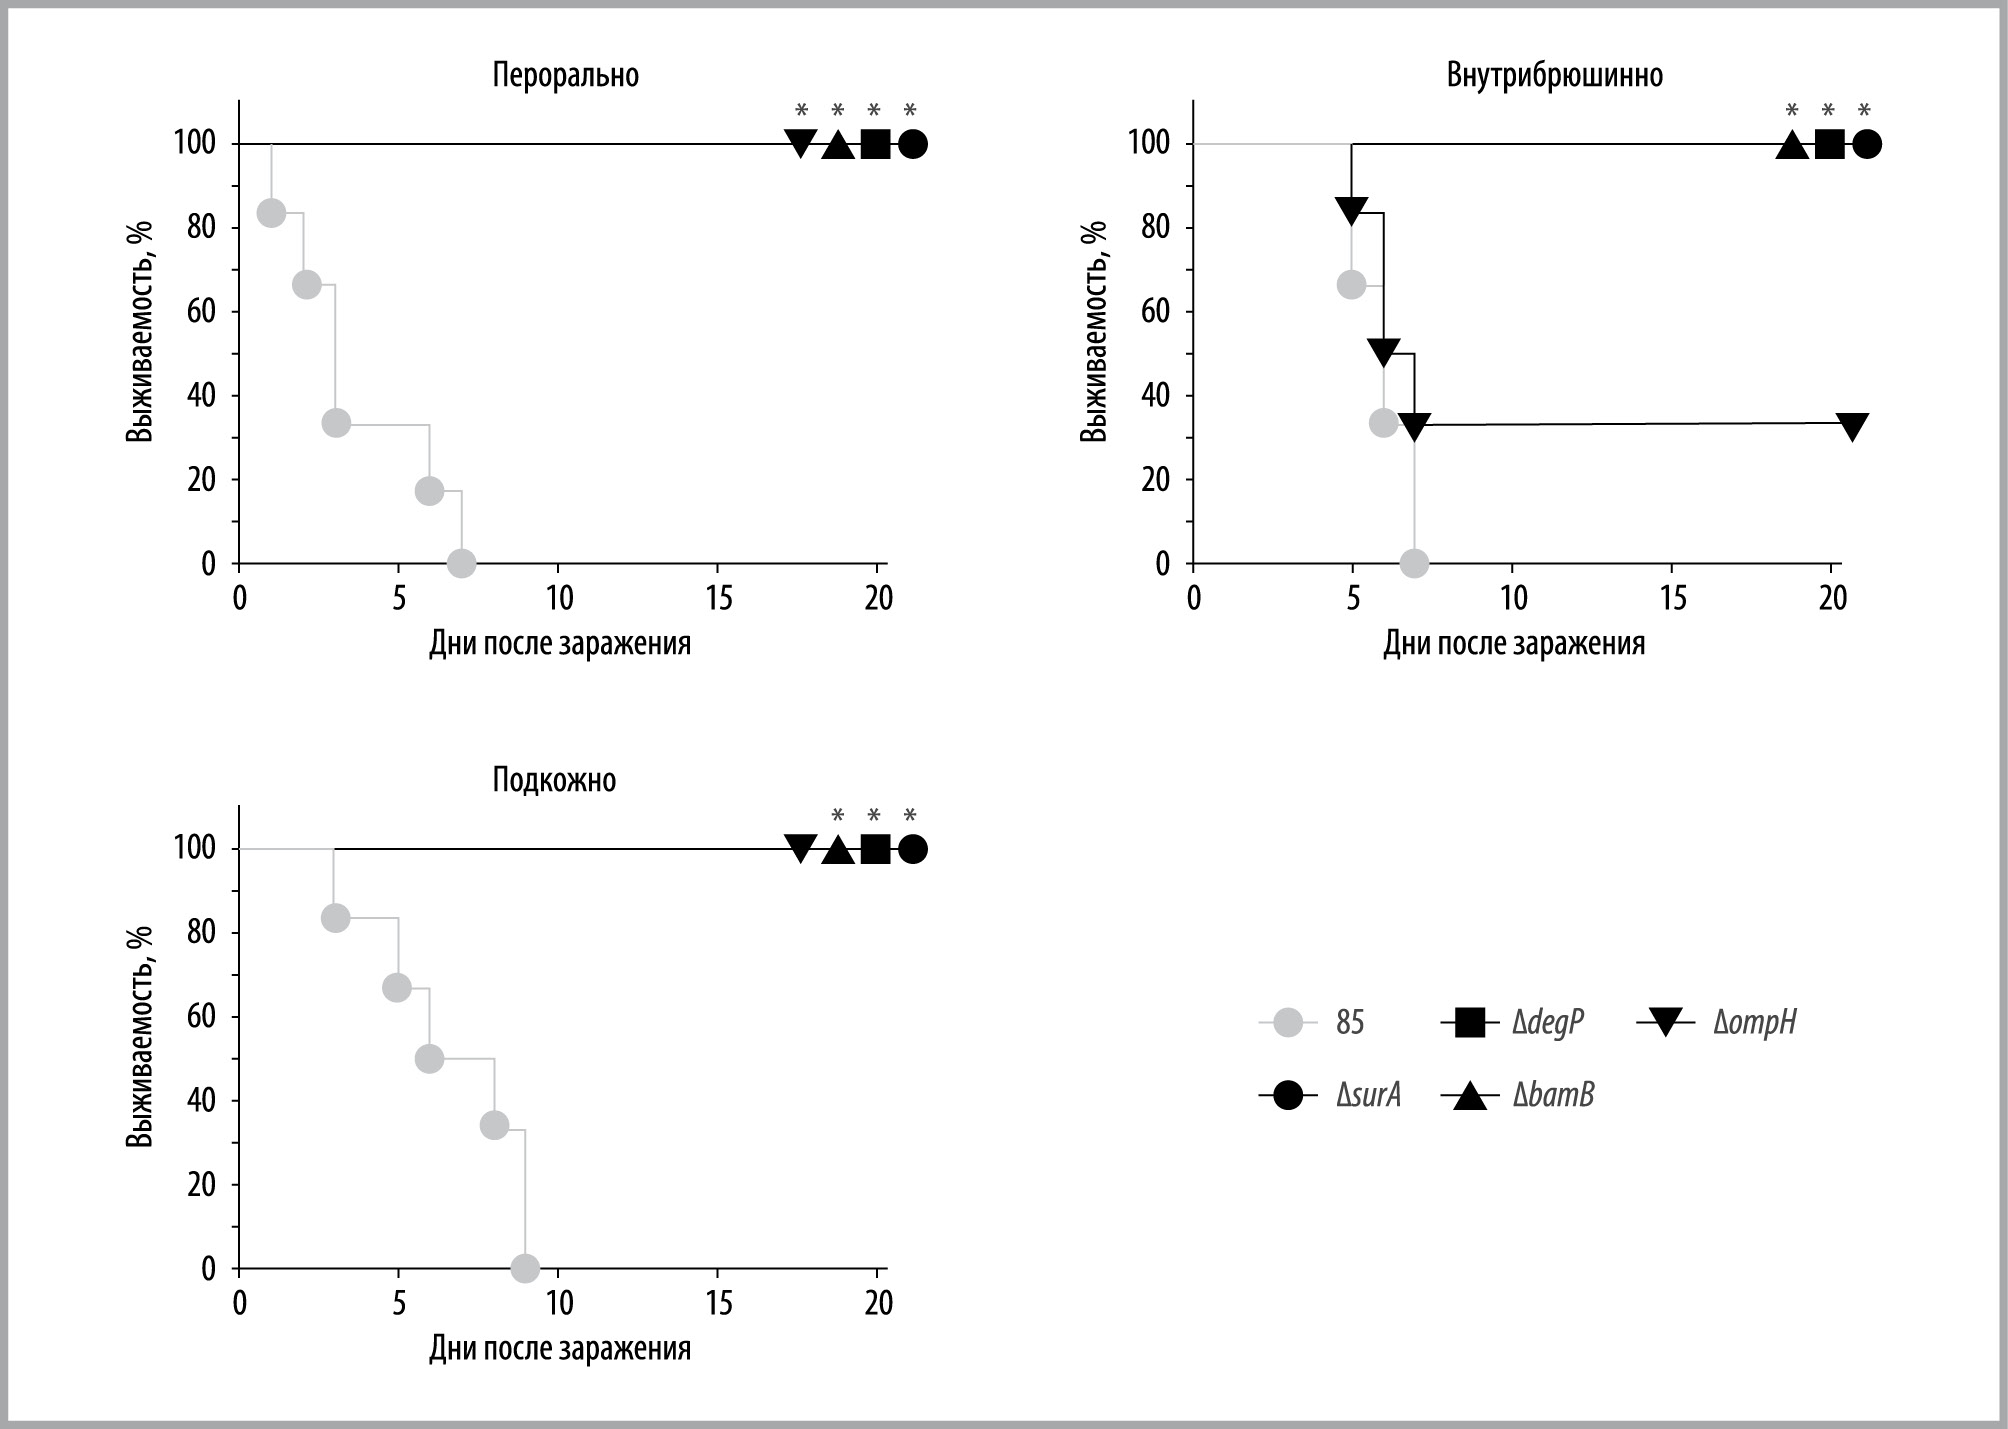
Рис. 5. Выживаемость беспородных мышей после заражения мутантными штаммами Y. pseudotuberculosis.
Таким образом, установлено, что белки BamB и OmpH необходимы для поддержания целостности клеточной оболочки псевдотуберкулезного микроба, белки SurA и BamB необходимы для устойчивости к сыворотке крови. Утрата DegP ведет к накоплению в наружной мембране предположительно неправильно свернутых или поврежденных белков. Делеция генов surA, degP, bamB ведет к высокой степени аттенуации мутантных штаммов Y. pseudotuberculosis для беспородных мышей при подкожном, внутрибрюшинном и пероральном способах введения. Гены surA, degP, bamB представляют собой перспективные молекулярные мишени для создания вакцинных штаммов Y. pseudotuberculosis.
Финансирование. Исследование выполнено в рамках отраслевой научно-исследовательской программы Роспотребнадзора на 2021—2025 гг.: «Проблемно-ориентированные научные исследования в области эпидемиологического надзора за инфекционными и паразитарными болезнями».
Авторы заявляют об отсутствии конфликта интересов.
- Nikaido H. Molecular basis of bacterial outer membrane permeability revisited. Microbiol Mol Biol Rev. 2003;67(4):593-656. https://doi.org/10.1128/MMBR.67.4.593-656.2003
- Driessen AJ, Nouwen N. Protein translocation across the bacterial cytoplasmic membrane. Annu Rev Biochem. 2008;77:643-667. https://doi.org/10.1146/annurev.biochem.77.061606.160747
- Sklar JG, Wu T, Kahne D, Silhavy TJ. Defining the roles of the periplasmic chaperones SurA, Skp, and DegP in Escherichia coli. Genes Dev. 2007; 21(19):2473-2484. https://doi.org/10.1101/gad.1581007
- Ge X, Wang R, Ma J, Liu Y, Ezemaduka AN, Chen PR, et al. DegP primarily functions as a protease for the biogenesis of β-barrel outer membrane proteins in the Gram-negative bacterium Escherichia coli. FEBS J. 2014;281(4): 1226-1240. https://doi.org/10.1111/febs.12701
- Denoncin K, Schwalm J, Vertommen D, Silhavy TJ, Collet JF. Dissecting the Escherichia coli periplasmic chaperone network using differential proteomics. Proteomics. 2012;12(9):1391-1401. https://doi.org/10.1002/pmic.201100633
- Obi IR, Francis MS. Demarcating SurA activities required for outer membrane targeting of Yersinia pseudotuberculosis adhesins. Infect Immun. 2013; 81(7):2296-2308. https://doi.org/10.1128/IAI.01208-12
- Ruiz-Perez F, Henderson IR, Leyton DL, Rossiter AE, Zhang Y, Nataro JP. Roles of periplasmic chaperone proteins in the biogenesis of serine protease autotransporters of Enterobacteriaceae. J Bacteriol. 2009;191(21):6571-6583. https://doi.org/10.1128/JB.00754-09
- Vertommen D, Ruiz N, Leverrier P, Silhavy TJ, Collet JF. Characterization of the role of the Escherichia coli periplasmic chaperone SurA using differential proteomics. Proteomics. 2009;9(9):2432-2443. https://doi.org/10.1002/pmic.200800794
- Wu T, Malinverni J, Ruiz N, Kim S, Silhavy TJ, Kahne D. Identification of a multicomponent complex required for outer membrane biogenesis in Escherichia coli. Cell. 2005;121(2):235-245. https://doi.org/10.1016/j.cell.2005.02.015
- Heuck A, Schleiffer A, Clausen T. Augmenting β-augmentation: structural basis of how BamB binds BamA and may support folding of outer membrane proteins. J Mol Biol. 2011;406(5):659-666. https://doi.org/10.1016/j.jmb.2011.01.002
- Galindo CL, Rosenzweig JA, Kirtley ML, Chopra AK. Pathogenesis of Y. enterocolitica and Y. pseudotuberculosis in Human Yersiniosis. J Pathog. 2011;2011:182051.
- Bottone EJ. Yersinia enterocolitica: the charisma continues. Clin Microbiol Rev. 1997;10(2):257-276. https://doi.org/10.1128/CMR.10.2.257
- Brubaker RR. Factors promoting acute and chronic diseases caused by Yersiniae. Clin Microbiol Rev. 1991;4(3):309-324. https://doi.org/10.1128/CMR.4.3.309
- Mühlenkamp M, Oberhettinger P, Leo JC, Linke D, Schütz MS. Yersinia adhesin A (YadA) — beauty & beast. Int J Med Microbiol. 2015;305(2):252-258. https://doi.org/10.1016/j.ijmm.2014.12.008
- Pisano F, Kochut A, Uliczka F, Geyer R, Stolz T, Thiermann T, et al. In vivo-induced InvA-like autotransporters Ifp and InvC of Yersinia pseudotuberculosis promote interactions with intestinal epithelial cells and contribute to virulence. Infect Immun. 2012;80(3):1050-1064. https://doi.org/10.1128/IAI.05715-11
- Seabaugh JA, Anderson DM. Pathogenicity and virulence of Yersinia. Virulence. 2024;15(1):2316439. https://doi.org/10.1080/21505594.2024.2316439
- El Tahir Y, Skurnik M. YadA, the multifaceted Yersinia adhesin. Int J Med Microbiol. 2001;291(3):209-218. https://doi.org/10.1078/1438-4221-00119
- Donnenberg MS, Kaper JB. Construction of eae deletion mutant of enteropathogenic Escherichia coli by using of positive-selection suicide vector. Infect Immun. 1991;59:4310-4317. https://doi.org/10.1128/iai.59.12.4310-4317.1991
- Datsenko K, Wanner B. One-step inactivation of chromosomal genes in Escherichia coli K-12 using PCR products. Proc Natl Acad Sci USA. 2000;97: 6641-6645. https://doi.org/10.1073/pnas.120163297
- Dentovskaya SV, Platonov ME, Shaikhutdinova RZ, Svetoch TE, Ivanov SA, Gapel’chenkova TV, et al. SurA Is Required for Outer Membrane Biogenesis and Can Be Used as a New Molecular Target for Plague Therapy. Mol. Genet. Microbiol. Virol. 2024;39:103-109. https://doi.org/10.3103/S0891416824700113
- Obi IR, Nordfelth R, Francis MS. Varying dependency of periplasmic peptidylprolylcis-transisomerases in pro-moting Yersinia pseudotuberculosis stress tolerance and pathogenicity. Biochem J. 2011;439:321-332. https://doi.org/10.1042/BJ20110767
- Towbin H, Staehelin T, Gordon J. Electrophoretic transfer of proteins from polyacrylamide gels to nitrocellulose sheets: procedure and some applications. Proc Natl Acad Sci U S A. 1979;76(9):4350-4. https://doi.org/10.1073/pnas.76.9.4350
- Ашмарин ИП, Воробьев АА. Статистические методы в микробиологических исследованиях. Москва; Медгиз, 1962.
- Barnes MG, Weiss AA. BrkA protein of Bordetella pertussis inhibits the classical pathway of complement after C1 deposition. Infect Immun. 2001; 69(5):3067-72. https://doi.org/10.1128/IAI.69.5.3067-3072.2001


Рекомендуем статьи по данной теме:
Дерматоскопические и патогистологические особенности дерматофибром.Клиническая дерматология и венерология. 2026;25(4):685-694
Высокая безопасность филлеров на основе агарозы. Собственное наблюдение.Клиническая дерматология и венерология. 2026;25(4):676-684
Коррекция признаков старения кожи лица с помощью экзосом.Клиническая дерматология и венерология. 2026;25(4):668-674
Антибактериальная резистентность в дерматологии: современный взгляд на проблему и место амоксициллина и клавулановой кислоты в лечении бактериальных инфекций кожи.Клиническая дерматология и венерология. 2026;25(4):660-667
Дерматозы как ятрогенное осложнение инвазивных аппаратных процедур.Клиническая дерматология и венерология. 2026;25(4):652-658
Эволюция эмолентов и активных компонентов в дерматологии.Клиническая дерматология и венерология. 2026;25(4):641-650
Лекарственно-индуцированная саркоидоподобная реакция на фоне терапии ингибиторами BRAF/MEK метастатической меланомы.Клиническая дерматология и венерология. 2026;25(4):632-640
Мазь такролимуса: селективный T-клеточный иммуносупрессант в дерматологии.Клиническая дерматология и венерология. 2026;25(4):619-630
Клинический случай лечения препаратом нетакимаб пациента с псориазом среднетяжелой степени тяжести, ассоциированным с метаболическим синдромом.Клиническая дерматология и венерология. 2026;25(4):613-618
Современные подходы к терапии NCMT-инфекций, передаваемых половым путем (N. gonorrhoeae, C. trachomatis, M. genitalium, T. vaginalis). Часть II. M. genitalium.Клиническая дерматология и венерология. 2026;25(4):603-612